ヒト血球から神経幹細胞への誘導変換における持続的な運命獲得とエピジェネティックな脱老化
血液細胞を直接神経幹細胞に変換するとそのエピジェネティック時計がリセットされるが、この研究はそのリセットが緩やかであり、増殖性神経幹細胞が出現した後も数週間続き、増殖が遮断された場合でさえも同様であることを示している。
日本語
コピー
要旨
転写因子による体細胞の直接変換は、多能性段階を経ずに末梢血から誘導神経幹細胞(iNSC)を作製できる興味深い経路である。このパラダイムがエピジェネティックな若返りを伴うことは示されているが、その過程のダイナミクスは依然として不明である。本研究では、2つのリプログラミング因子 SOX2 と cMYC を過剰発現させることで、新生児から101歳のドナーまでの赤血球前駆細胞から iNSC を作製した。エピジェネティック老化時計アルゴリズムを用いて、以前の知見を確認した。すなわち、高齢ドナー由来の iNSC は顕著なエピジェネティック若返りを示し、低継代および高継代でそれぞれ元のドナー年齢の約13%と5%を保持していた。iNSC 変換中のエピジェネティック若返りの経時変化を追跡することで、この過程が大部分において長期的であり、数週間にわたって持続し、増殖を抑制した条件下でも進行することを見出した。若年ドナーと高齢ドナー由来の iNSC 間のトランスクリプトームの差異も、変換時間の延長に伴って消失した。この観察と一致して、確立された iNSC 株は年齢関連の細胞特性を欠いており、iPS細胞およびその派生細胞と類似していた。注目すべきことに、DNAメチル化とRNAシーケンスデータのタイムコース解析は、真の NSC 特性の獲得が、増殖性の PAX6 陽性 iNSC が出現する時点をはるかに超えて起こることを示した。これらの過程の予想外に緩やかなダイナミクスは、iNSC 変換を体細胞転分化とエピジェネティック若返りのメカニズムを解明する理想的なモデルにしている。
キーワード: 老化、細胞リプログラミング技術、エピジェネティクス、神経幹細胞
序論
細胞プログラミングの台頭——iPS細胞(iPSC)リプログラミングや直接細胞運命変換を含む、細胞のアイデンティティを操作するあらゆる技術を指す——は、疾患モデリングや再生細胞移植などの応用に向けたヒト神経細胞の作製を大きく促進してきた。トランスクリプトームとエピジェネティックな特徴の顕著な再構築イベントは、細胞プログラミングの過程で重要な役割を果たす。しかし、これらの過程のダイナミクスとその根底にあるメカニズムは部分的にしか理解されていない。iPSC リプログラミングの過程では、ゲノムワイドな再構築が誘導され、まずソース細胞の転写プログラムのサイレンシング、続いて一時的なエンハンサーの活性化、最終的に Sall4、Nanog、Dppa2 などの多能性関連遺伝子の上方制御が起こり、これらの遺伝子が獲得された多能性状態を開始、成熟、および/または安定化させる(Buganim et al. 2013; Deng et al. 2021)。有糸分裂後誘導ニューロン(iN)への直接変換——マウス線維芽細胞で転写因子の組み合わせ Ascl1、Brn2 に Myt1l を加えて過剰発現させることで最初に成功した(Vierbuchen et al. 2010)——は、多能性中間状態を経ずに神経細胞を作製するより直接的な経路を提供する。
興味深いことに、iPSC リプログラミングと iN への直接変換は、複数の老化特性に対してまったく異なる影響を及ぼす。DNAメチル化(DNAm)ベースのアルゴリズムで生物学的年齢を評価すると(Horvath 2013; Horvath et al. 2018)、iPSC リプログラミングはそれを胚段階まで逆転させるが(Horvath 2013; Lo Sardo et al. 2017; Weidner et al. 2014)、iN はソース細胞の DNAm 年齢を保持する(Huh et al. 2016)。注目すべきことに、DNAm 年齢は老化関連細胞(機能)障害の直接的な測定ではないため、生物学的年齢の代替指標としか見なせない。しかし、iPSC と iN の間での老化関連細胞特性の差異的な保持は、テロメア長、ミトコンドリアの健康、核の組織化、転写老化シグネチャーの程度などにも反映されている(Kim et al. 2018; Lapasset et al. 2011; Mertens et al. 2015; Miller et al. 2013; Prigione et al. 2011; Tang et al. 2017; Yang et al. 2015)。
2011年、Kim らは体細胞を依然として増殖能を持つ誘導神経幹細胞(iNSC)へ直接変換するという構想を提唱した(Kim et al. 2011)。当初の手法は、マウス線維芽細胞で iPSC リプログラミング用の転写因子一式、すなわち Oct4、Sox2、Klf4、c-Myc を過剰発現させるものだった。その後、複数の研究グループがヒト細胞で簡素化および/または調整された転写因子の組み合わせを用いたプロトコルを発表している(レビューとして Flitsch and Brüstle 2019)。以前の研究で(Sheng et al. 2018)、我々は入手が容易なヒト PBMC 由来赤血球前駆細胞(EPC)が、Sendai ウイルス(SeV)を介した SOX2 と cMYC という2つの転写因子の過剰発現だけで、クローン性に増殖する iNSC へ変換できることを見出した。iNSC は三方向分化能を持ち、その神経分化は領域パターン化が可能で、疾患モデリングや神経移植に利用できる。実際、iNSC 由来ニューロンは in vitro および in vivo で成熟後に電気生理学的機能を示す(Berg et al. 2024; Sheng et al. 2018)。さらに我々は、iNSC が全体として iPSC 由来 NSC と類似しており、トランスクリプトームの特徴だけでなくエピジェネティックおよび細胞年齢関連の特徴も同様であることを示した(Sheng et al. 2018)。しかし、細胞のアイデンティティと年齢の特徴が変換過程でどのように再構築されるかという問いは未解決のままだ。本研究は、一方で細胞運命変換のダイナミクスを、他方で老化特性の喪失を探究することを目的とした。そのために、新生児から高齢ドナーまでの血液から、ヒトの全ライフスパンをカバーする同遺伝子対の iNSC と iPSC 由来 NSC を構築し、特徴づけた。続いて、転分化の時間過程全体にわたって DNAm と RNA シーケンス解析を行うことで、血液から iNSC への変換過程を剖析した。我々の予想に反して、結果はこれら2つの過程——エピジェネティック若返り(Horvath et al. (2018) が発表したエピジェネティック時計アルゴリズムの結果に基づくエピジェネティック年齢の低下と定義する)と細胞運命の固定——が大部分において緩やかに進行し、エピジェネティック若返りは増殖を抑制した条件下でも継続することを示した。
方法
細胞培養技術
EPC の誘導
末梢血単核球(PBMC)は新鮮採血した血液から vacutainer CPT チューブ(BD Bioscience、San Jose、USA)を用いて分離し、1800 rcf で 30 分間遠心した。分離した単核球は 1× DPBS(Thermo Fisher Scientific、Waltham、USA)で 2 回洗浄した後、3–5 × 10⁶ 個の PBMC を 90% FCS(Thermo Fisher Scientific)+10% DMSO(Sigma-Aldrich、St. Louis、USA)で凍結保存するか、そのまま EPC 培地に再懸濁して EPC 誘導に供した。EPC 培地は StemSpan SFEM(Stemcell Technologies、Vancouver、Canada)に 1% CD Lipid(Thermo Fisher Scientific)、2 U/mL 組換えヒト(rh)エリスロポエチン(Bio-Techne、Minneapolis、USA)、100 ng/mL rhSCF(Bio-Techne)、40 ng/mL rhIGF1(Bio-Techne)、1 μM デキサメタゾン(Sigma-Aldrich)、10 ng/mL rhIL3(Bio-Techne)を添加して調製した。誘導は既報のプロトコルに若干の改変を加えて行った(van den Akker et al. 2010)。簡潔に述べると、細胞はコーティングなしの 6 ウェルプレートで 6% CO2、37°C にて培養した。EPC 生成の第 1 日から第 6 日まで、毎日各ウェルに EPC 培地 1 mL を新たに追加した。第 7 日に密度 1.075 ρ の Percoll(Sigma-Aldrich)密度勾配で EPC を濃縮した。遠心後、EPC を含む中間相のリングを回収した。細胞を 2 回洗浄した後、EPC を rhIL3 不含 EPC 培地に再懸濁し、1–1.5 × 10⁶ 個/6 ウェルの密度でコーティングなしの 6 ウェルプレートに播種して成熟を継続した。濃縮後の EPC は EPC 生成の第 9 日まで増殖させ、第 8 日に培地を追加した。第 9 日に EPC を含む細胞懸濁液を回収し、1–2 × 10⁶ 個の細胞を rhIL3 不含 EPC 培地に 10% DMSO を添加した液で凍結保存した。
iPSC のリプログラミングと NSC への分化
EPC は DMEM/F12(Thermo Fisher Scientific)で解凍した。6% CO2、37°C で 1 時間インキュベートした後、3 × 10⁵ 個の EPC を 15 mL 遠心管に分注し、1500 rpm で 5 分間遠心した。上清を捨て、細胞ペレットを 250 μL の rhIL3 不含 EPC 培地に再懸濁した。この培地には、感染多重度(MOI)5:5:1 に希釈した CytoTune 2.0(Thermo Fisher Scientific)SeV、すなわち KLF4-OCT3/4-SOX2 を過剰発現させるためのマルチシストロン性ベクターと、cMYC および KLF4 をそれぞれコードする単一ベクターが含まれていた。続いて細胞とウイルスを含む溶液をコーティングなしの 4 ウェルプレートに移し、6% CO2、37°C で約 24 時間インキュベートした。翌日、感染後の細胞を回収し、1500 rpm で 5 分間遠心した。ウイルスを含む上清を捨て、細胞ペレットを 500 μL の rhIL3 不含 EPC 培地に再懸濁し、コーティングなしの 4 ウェルプレートに播種した。iPSC リプログラミング第 3 日に細胞を回収し、1300 rpm で 5 分間遠心した。上清を捨て、細胞を Matrigel(Corning Inc.、Corning、USA;DMEM/F12 で 1:60 に希釈)をコーティングした 10 cm ディッシュに、rhIL3 不含 EPC 培地を用いて再播種した。iPSC リプログラミング第 5 日から第 11 日にかけて、StemMACS iPS-Brew XF の濃度を段階的に高める部分培地交換により、培地を StemMACS iPS-Brew XF(添加剤入り;Miltenyi Biotec、Bergisch Gladbach、Germany)へと徐々に置き換えた。iPSC リプログラミング約第 20 日に、顕微鏡下で手作業により最大 24 個のクローンを拾い、Matrigel(DMEM/F12 で 1:60 に希釈)をコーティングした 24 ウェルプレートに、10 μM Rock 阻害剤 Y-27632(Cell Guidance Systems、Cambridge、UK)を添加した StemMACS iPS-Brew XF で播種した。SeV 導入遺伝子を除去するため、この操作を週に 1 回、単一クローンの拾い上げを 5 回行うまで繰り返した。5 回目の拾い上げ後、細胞をコンフルエントになるまで増殖させた。コンフルエントに達した後、0.5 mM EDTA(Carl Roth、Karlsruhe、Germany)で 3 分間インキュベートして細胞を解離させた。EDTA を捨て、ピペッティングで細胞を剥離し、剥離した細胞数に応じたサイズの培養器に播種した。導入遺伝子を含まない iPSC 株は、vitronectin(Thermo Fisher Scientific;1× DPBS で 1:100–1:200 に希釈)をコーティングした培養器で StemMACS iPS-Brew XF を用いて常法により増殖させ、その後 90% StemMACS iPS-Brew XF +10% DMSO で凍結保存した。
iPSC から安定した NSC 集団を得るため、Reinhardt ら(2013)を改変したプロトコルを用いた。まず StemPro Accutase(Thermo Fisher Scientific)で 37°C、5〜15 分間処理し、iPSC を単一細胞に解離した。細胞懸濁液を DMEM/F12 で希釈し、1000 rpm で 5 分間遠心した。続いて 2 × 10⁶ 個の iPSC を 1xN2B27(DMEM/F12 と Neurobasal を 1:1 で混合し、0.5× N2 サプリメント、0.5× ビタミン A 不含 B27 サプリメント、2 mM L-グルタミン、0.0025% BSA、1× ペニシリン/ストレプトマイシンを添加。試薬はすべて Thermo Fisher Scientific 製)に再懸濁し、3 μM CHIR99021(Miltenyi Biotec)、0.5 μM purmorphamine(Miltenyi Biotec)、10 μM SB431542(Axon Biotech、ドイツ・Hengersberg)、1 μM dorsomorphine(Tocris Bioscience、英国・ブリストル)を加え、さらに 10 μM Y-27632 を補充してから、製造元の指示に従って前処理した AggreWell 800 マイクロウェルプレート(Stemcell Technologies)に移した。AggreWell 800 プレートは 300 rpm で 3 分間遠心した。翌日、CHIR99021、purmorphamine、SB431542、dorsomorphine を含む 1xN2B27 で半量培地交換を行った。iPSC が約 48 時間凝集して胚様体を形成した後、慎重に AggreWell から剥がして未コーティングの 6 cm ディッシュに移した。1 日後、培地を 3 μM CHIR99021、0.5 μM purmorphamine、64 μg/mL LAAP(Sigma-Aldrich。以下 1xN2B27 + CPL)を補充した 1xN2B27 に交換した。NSC 作製 4 日目に再度培地交換し、5 日目に 1 mL ピペットで胚様体を小片に吹きほぐした。1 ウェルの AggreWell から吹きほぐした胚様体を、Matrigel コーティング(DMEM/F12 で 1:60 希釈)した 6 ウェル培養プレート 1 枚に分配し、10 μM Y-27632 を補充した 1xN2B27 + ペニシリン/ストレプトマイシン + CPL 中で播種した。この日以降、NSC は Matrigel コーティング(DMEM/F12 で 1:60 希釈)した培養器皿で、ペニシリン/ストレプトマイシン不含培地を用いて常法どおり培養した。1〜2 日ごとに培地交換し、細胞がコンフルエントになったら Accutase で継代した。継代比は通常 1:4〜1:12。5 代目までは、再播種時に毎回 10 μM Y-27632 を添加した。
iNSC への変換と増幅
EPC は Sheng ら(2018)の方法を若干改変して iNSC に変換した。変換 0 日目、前述の方法で 1.5 × 10⁵ 個の EPC を解凍し、rhIL3 不含 EPC 培地中で SeV-SOX2 および SeV-cMYC(いずれも MOI 5。両者とも CytoTune 1.0 キット(Thermo Fisher Scientific、現在は ID Pharma、東京、日本より入手)に含まれる単一ベクター SeV)を用いて、1500 rcf、32°C、30 分間の遠心感染を行った。遠心後、細胞ペレットをウイルス含有上清に再懸濁し、未コーティングの 4 ウェルプレートに播種した。細胞は 37°C、21% O2、加湿インキュベーターで約 24 時間培養した。翌日、浮遊細胞を回収し、1500 rpm で 5 分間遠心してペレット化し、75% iNSC 変換培地に再懸濁した。この培地は 2× N2B27(Advanced DMEM/F12(Thermo Fisher Scientific)と Neurobasal を 1:1 で混合し、1× N2 サプリメント、1× ビタミン A 不含 B27 サプリメント、2 mM L-グルタミン、0.0025% BSA を添加)に 3 μM CHIR99021、1 μM purmorphamine、0.5 μM A83-01(Tocris Bioscience)、10 ng/mL ヒト LIF(Novoprotein、Fremont、米国)、64 μg/mL LAAP(Sigma-Aldrich)、1 μg/mL laminin(Sigma-Aldrich)、5 μM tranylcypromine(Enzo Biochem Inc.、Farmingdale、米国)を加えたものに、25% の rhIL3 不含 EPC 培地を混合して調製し、約 1.3 × 10⁴ 個/cm2 の密度で Matrigel コーティング(DMEM/F12 で 1:60 希釈)した培養器皿に播種した。この日以降、変換中の細胞は 37°C、5% O2 で培養した。変換 3 日目に、75% iNSC 変換培地と 25% rhIL3 不含 EPC 培地からなる培地を加えた。5 日目以降、新たに出現した接着性 iNSC は 100% iNSC 変換培地で培養し、1 日おきに全量培地交換した。10〜11 日目以降、iNSC は iNSC 増幅培地(2× N2B27 に 3 μM CHIR99021、0.5 μM purmorphamine、0.5 μM A83-01、10 ng/mL ヒト LIF、64 μg/mL LAAP を添加)で培養した。変換後 3 週間以内に、神経上皮様形態の細胞からなるコロニーを顕微鏡下でピックアップした。多クローン性細胞株を樹立するため、変換 21 日目に残りのコロニーを前述の方法で Accutase により解離し、合一して約 1 × 10⁵ 個/cm2 の密度で Matrigel コーティング(DMEM/F12 で 1:60 希釈)した培養器皿に播種した。iNSC 細胞株は 1〜2 日ごとに培地交換した。細胞株は少なくとも週 1 回、できれば細胞が 100% を超えてコンフルエントになった時点で Accutase により継代した。典型的な継代比は 1:3〜1:9。変換 35 日目以降、iNSC は 37°C、21% O2 の常酸素条件で培養した。SeV の除去は、樹立した iNSC 細胞株を 39°C で長期培養(通常 4〜7 週間)することで行った。この間、週 1 回 RT-PCR で SeV を介した導入遺伝子の発現をモニタリングした。両方の SeV の発現が RT-PCR の検出限界未満になった後、細胞を 37°C に戻した。1 週間後に再度 RT-PCR を行い、SeV が持続的に消失していることを確認した。
EPC から iNSC への転換過程で増殖速度を調節するため、転換14日目以降、細胞を2%(v/v)グリセロール(Sigma-Aldrich)または2 mM チミジン(Sigma-Aldrich)で処理した。この間、iNSC は週1回継代し、継代のたびに Neubauer 計算板(Paul Marienfeld、Lauda-Königshofen、ドイツ)で細胞数を推定して集団倍加数を算出した。培地交換のたびにグリセロールを添加したが、継代当日は加えなかった。チミジン処理は常に継代の翌日に開始し、転換2〜5週目では48時間、6〜7週目では24時間処理した後に停止した。
NGN2 過剰発現による iNSC の分化誘導
転換の早い段階で iNSC を速やかに有糸分裂後ニューロンへ分化させるため、転写因子を介した正向プログラミング法を用いた。転換7日目に、逆テトラサイクリン制御トランス活性化因子(rtTA)をコードするレンチウイルスと、テトラサイクリン応答プロモーターエレメント(TRE)制御下の NGN2 発現カセットをコードするレンチウイルスの2種(1:50〜1:80 希釈)を iNSC に感染させた。その後、iNSC は転換21日目まで通常通り培養し、この時点で 8.3 × 10⁴ 個/cm2 の密度で再播種した。翌日、培地を 10 ng/mL BDNF、10 ng/mL GDNF、64 μg/mL LAAP、5 μM DAPT、1 μg/mL DOX を含む NGMC に交換して正向プログラミングを誘導した。iNSC の分化は常酸素条件下、37°C、O2 濃度 21% で行った。分化5日目から7日目にかけて、分裂活性の高い細胞を死滅させるため 5 μM シタラビン/Ara-C(Merck Millipore)を分化培地に添加した。20日間の分化過程で、培地交換は週3回行った。
分子生物学的手法
DNAm 解析
DNA 抽出には Qiagen(ドイツ、ヒルデン)の Blood & Tissue キットを製造元の指示に従って使用した。抽出した DNA の濃度と純度は Nanodrop 2000c で測定した。DNAm 解析のため、DNA サンプルを AE バッファー(Qiagen)で 55 ng/μL に希釈し、ボン大学次世代シーケンシングコアプラットフォームに送付した。サンプルは亜硫酸水素塩変換後、Infinium MethylationEPIC 850 k アレイ(Illumina)で解析した。生データは R 環境(R Core Team 2019)で minfi パッケージ(Aryee et al. 2014)を用いて処理した。その後、(Horvath 2013 および Horvath et al. 2018)に基づく予測アルゴリズムを用い、得られた beta 値からサンプルのエピジェネティック年齢(DNAm 年齢とも呼ばれる)を算出した。さらに R で ChAMP(Morris et al. 2014; Tian et al. 2017)を用い、DNAm データの差異メチル化プローブおよび領域(それぞれ DMP と DMR)を解析した。ChAMP の遺伝子セット富化解析の結果はさらに rrvgo(Sayols 2020)で処理し、Venn 図はヘント大学提供のオンラインツールで作成した(http://bioinformatics.psb.ugent.be/webtools/Venn/)。ChAMP で遺伝子オントロジー(GO)項目を取得するほか、missMethyl パッケージ(Phipson et al. 2016)を用いて同パッケージが同定した有意な最可変部位(MVP)を遺伝子にマッピングし、続いて R で Reactome PA(Yu and He 2016)によるパスウェイ解析を行った。
RNA シーケンシング解析
製造元の指示に従い、Qiagen の RNeasy キットで RNA を抽出した。RNA サンプルの濃度と純度は Nanodrop 2000c で分析した。RNA サンプルは −80°C で保存した。bulk RNA シーケンシングでは、RNase 不含の H2O(Qiagen)で RNA を約 50 ng/μL に希釈し、ボン大学次世代シーケンシングコアプラットフォームに送付した。そこでサンプルはまず QuantSeq 3′mRNA-Seq ライブラリー構築(Lexogen GmbH、オーストリア、ウィーン)を行い、続いて HiSeq 2500 V4(Illumina)で high output モードによりシーケンシングした。
生データはボン大学生物情報学コアプラットフォームが処理した。簡潔に述べると、まず cutadapt で Illumina Universal Adapter を除去し(Martin 2011)、次に STAR で reads をヒトゲノム(GRCh38)にアラインメントした(Dobin et al. 2013)。featureCounts を用いて reads を Ensembl 定義の遺伝子に割り当てた(Liao et al. 2014)。read をカウントする条件は3つある。第一に唯一のアラインメントであること、第二に遺伝子の鎖と一致すること、第三に1つの遺伝子のみと重複すること、すなわちその read が単一の遺伝子に曖昧さなく割り当てられることである。下流の統計解析には、サンプル間の総 read カウントが少なくとも100、かつ少なくとも2サンプルでカウントが40以上の遺伝子のみを含めた。統計解析は R 環境で Bioconductor パッケージ limma を用いて行った(Huber et al. 2015; Ritchie et al. 2015)。同一ドナーのサンプルは時間および細胞状態にわたり反復測定されるため、統計モデルではドナーをランダム効果とし、blocking factor として duplicateCorrelation 関数に渡した。さらにシーケンシングバッチと性別を固定効果としてモデル化し、不要な変動を補正した。統計的対比は主要な固定効果に対して計算し、この効果は年齢群、細胞種、時間を単一の変数に統合して定義した。各対比の多重検定補正済み p 値(false discovery rate、FDR)は Benjamini-Hochberg 法で算出した。ボルケーノプロットやヒートマップなどのデータ可視化には、それぞれ R パッケージ ggplot2(Wickham 2016)と ComplexHeatmap(Gu et al. 2016)を用いた。差異発現遺伝子(FDR < 0.05)のパスウェイ富化解析(Fisher 検定)は Bioconductor パッケージ clusterProfiler で行った(Wu et al. 2021)。遺伝子セットサイズが少なくとも10、多くとも500のパスウェイのみを考慮した。一部の解析では、富化された GO terms を既述の方法で rrvgo により treemap 図として提示した。
免疫細胞化学と蛍光イメージング
形質転換後2週間以内の細胞染色では、接着細胞と浮遊細胞の両方を回収する。まず上清を回収し、前述の方法で Accutase を用いて接着細胞を消化する。接着画分と非接着画分を合わせ、適切な遠心カップで500 g、7分間遠心して細胞をスライドガラス上に遠心する。その後、HBSS に溶解した抗 CD71 マウスモノクローナル IgG 抗体(1:100;BD Pharmingen, Franklin Lakes, USA)で室温、30分間インキュベートする。HBSS で抗体溶液を洗い流し、4% PFA(Thermo Fisher Scientific)で室温、5分間固定する。1% BSA を含む1× DPBS で再度洗浄した後、1% BSA と0.5% Triton-X100(Sigma-Aldrich)を含む1× DPBS 中で室温、30分間インキュベートする。続いて、1% BSA と0.3% Triton-X100 を含む1× DPBS 中で、抗 DACH1 ウサギポリクローナル IgG 抗体(1:100;Proteintech, Planegg-Martinsried, Germany)を用いて室温、2時間染色する。HBSS で洗浄後、1% BSA と0.3% Triton-X100 を含む1× DPBS 中で、二次抗体であるヤギ抗マウス IgG(H + L)Alexa Fluor 555およびヤギ抗ウサギ IgG(H + L)Alexa Fluor 488(いずれも Thermo Fisher Scientific)と室温、30分間インキュベートする。さらに1% BSA を含む1× DPBS で細胞を洗浄し、2 μg/mL の4′,6-ジアミジノ-2-フェニルインドール二塩酸塩(DAPI;Sigma-Aldrich)で室温、5分間核染色する。最後に1× DPBS でスライドガラスを洗浄し、133.33 mg/mL Mowiol-488と25 mg/mL DABCO(いずれも Carl Roth)で封入し、カバーガラスをかける。
接着培養したすべての細胞標本は4% PFAで室温、10 min固定し、その後1× DPBSで1回洗浄した。細胞は10% FCSを含む1× DPBSで室温、2 hブロッキングした。ブロッキング液には0.5% Triton-X100を加えて細胞を透過処理した。ブロッキング後、細胞を5% FCS + 0.3% Triton-X100を含む1× DPBSで希釈した一次抗体と4°Cで一晩インキュベートした:ニワトリポリクローナルIgY抗MAP2(1:1000;Bio-Techne)、マウスモノクローナルIgG抗γH2AX(1:250;Merck Millipore)、マウスモノクローナルIgG抗LMNA/C(1:200;Abcam, Cambridge, UK)、マウスモノクローナルIgM抗O4(1:500;Bio-Techne)、マウスモノクローナルIgG抗S100β(1:1000;Sigma-Aldrich)、マウスモノクローナルIgG抗SOX2(1:100;Bio-Techne)、マウスモノクローナルIgG抗TUBB3(1:1000;BioLegend, San Diego, USA)、ウサギポリクローナル抗GFAP(1:1000;Merck Millipore)、ウサギポリクローナルIgG抗LAP2a(1:250;Abcam)、ウサギポリクローナルIgG抗NES(1:200;Bio-Techne)、ウサギモノクローナルIgG抗DCX(1:200;Abcam)。翌日、細胞を1× DPBS + 0.3% Triton-X100で3回洗浄し、+ 0.3% Triton-X100を含む1× DPBSで希釈した二次抗体と室温、2 hインキュベートした:ヤギ抗ニワトリIgY(H + L)Alexa Fluor 647コンジュゲート、ヤギ抗マウスIgG(H + L)Alexa Fluor 488および555コンジュゲート、ヤギ抗マウスIgM(H + L)Alexa Fluor 488コンジュゲート、ヤギ抗ウサギIgG(H + L)Alexa Fluor 488および555コンジュゲート(いずれもThermo Fisher Scientificより購入)。さらに1× DPBS + 0.3% Triton-X100で3回洗浄した後、2 μg/mL DAPIで室温、5 minインキュベートして核を対比染色した。最後に1× DPBSで細胞を1回洗浄し、133.33 mg/mL Mowiol-488と25 mg/mL DABCOを含む封入剤で封入した。封入した標本は4°Cで少なくとも一晩乾燥させてからイメージングした。
免疫蛍光染色の画像取得は、Zeiss(Oberkochen, Germany)AxioImagerを用いて手動で行うか、IN Cell Analyzer 2200(GE Healthcare Bio-Sciences Corp, Piscataway, USA)を用いて自動で行った。定性的提示に用いる画像の色の明るさとコントラストは、画像取得直後に使用した顕微鏡付属のソフトウェアで調整するか、後からImageJ(National Institutes of Health, Bethesda, USA;バージョン1.52a Java 1.8.0_181、64ビット)で調整した。免疫蛍光染色の定量解析は未改変の生データに対して行い、CellProfiler(Kamentsky et al. 2011;Broad Institute, Cambridge, USA;バージョン2.2.0)のパイプラインを使用した。このパイプラインは、あらかじめ設定されたパラメータに従って、評価対象のすべての画像に主要オブジェクト認識アルゴリズムを自動かつ一貫して適用し、認識された主要オブジェクトの範囲内でピクセル強度を定量する。画像の定量後、さらにCellProfilerのパイプラインを用いて、すべての画像に背景差し引きと色の明るさの調整を自動かつ一貫して適用し、対応する定性的提示に用いた。
データ処理と統計解析
数値の生データは各章に記載のとおり Microsoft Excel(Microsoft、米国 Redmond、Office バージョン 16.16.27)で処理した。ドットプロットは Microsoft Excel で作成し、ボックスプロットは BoxPlotR のウェブツール(http://shiny.chemgrid.org/boxplotr/)で作成した。ボックスプロットでは、中央線が中央値を、箱の境界が R ソフトウェアで求めた第 25 および第 75 パーセンタイルを表し、ひげは第 25 および第 75 パーセンタイルから四分位範囲の 1.5 倍だけ外側に伸び、外れ値は点で示し、データ点は白抜きの円で描いた。特に断りのない限り、統計解析は R で行った。まず、変数が線形モデルの仮定を満たすか判断するため、正規性の検討には Kolmogorov–Smirnov 検定または Shapiro Wilk 検定を、等分散性の検討には Levene 検定または F 検定をそれぞれ行った。解析対象の変数が正規分布に従う場合は、2 群の比較には Welch の二標本 t 検定を、3 群以上の比較には独立した一元配置 ANOVA をそれぞれ行った。ANOVA の後には多重比較を行い、等分散の場合は Tukey の正直有意差検定を、不等分散の場合は Games-Howell 検定を用いた。解析対象の変数が正規分布に従わない場合は、対応するノンパラメトリック検定、すなわち Wilcoxon 順位和検定および Kruskal Wallis 検定を計算した。Kruskal Wallis 検定の後には Wilcoxon 順位和検定による多重比較を行った。有意水準は p < 0.05 とし、多重比較の際は既定の方法で補正した。図中の有意水準は次のように示した。:p < 0.05、:p < 0.01、:p < 0.001、****:p < 0.0001。図の作成には Inkscape(Free Software Foundation Inc.、米国 Boston、バージョン 0.92.2)を用いた。
結果
年齢 0~101 歳のドナー由来の血球からヒト iNSC を樹立できる
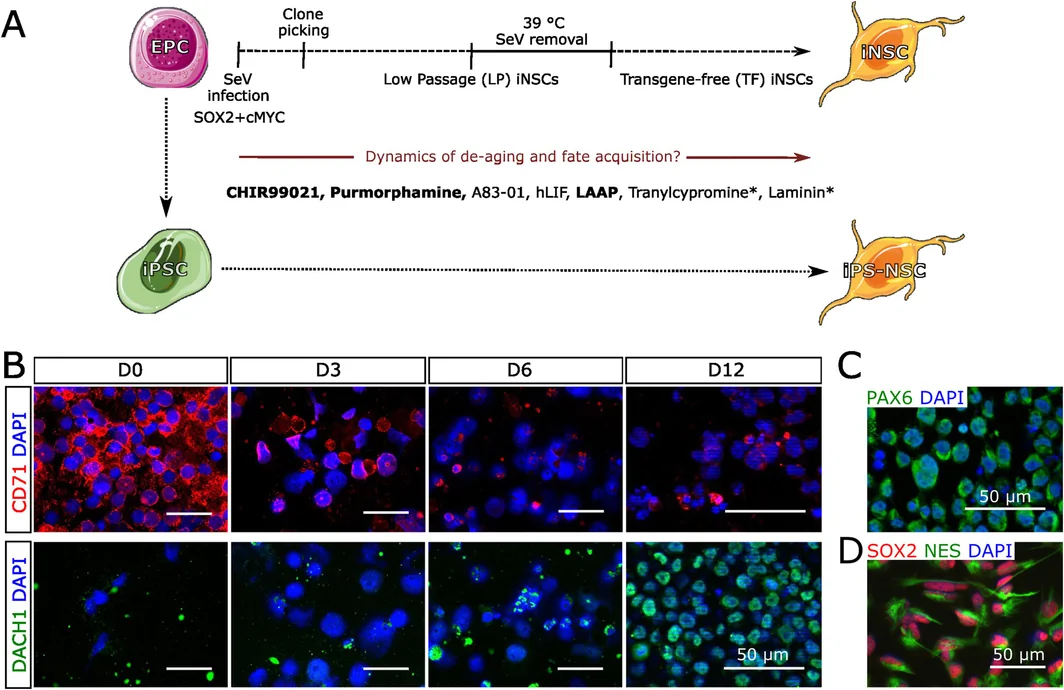
われわれの以前の研究は、31~62 歳のドナー由来 EPC から作製した iNSC がエピジェネティック年齢の顕著な低下を示すことを初めて明らかにした(Sheng et al. 2018)。老化形質のリセットをより詳細に調べるため、まずドナーコホートを 15 人に拡大し、年齢幅を 0 歳から 101 歳まで広げた(表 S1)。対照として、同じ EPC サンプルから同系の iPSC 由来 NSC(iPS-NSC;Reinhardt et al. 2013)を調製した。iPSC の派生物であるこれらは完全な年齢リセットを経る(Lo Sardo et al. 2017;Sheng et al. 2018)。どちらのプロトコルも sonic hedgehog および Wnt シグナルを促進することで増殖を維持し、得られた NSC のトランスクリプトームと分化能はきわめて類似していた(図 1A;Sheng et al. 2018)。iNSC の作製には、SOX2 と cMYC を強発現させるため SeV システムを用いた。SeV 導入後、EPC は数日で血球マーカー CD71 を下方制御し、感染後 12 日目には形質転換中の細胞で NSC マーカー DACH1 の発現が検出できた(図 1B)。同じ時点で細胞は PAX6 も発現していた(図 1C)。トランスジーンを除去し、in vitro 培養を長期化した後でも、iNSC とその同系 iPS-NSC 細胞株はいずれも NSC マーカー SOX2 および NES を均一に発現することが確認された(図 1D;図 S1A)。SNP 解析による品質管理は、細胞リプログラミング後およびそれに続く少なくとも 20 継代の増幅(6 か月に及ぶ連続 in vitro 培養に相当)後も iNSC と iPS-NSC のゲノムが完全であることを裏付けた(図 S1B)。さらに、iNSC と iPS-NSC はいずれも TUBB3 陽性ニューロン、S100β および GFAP 陽性アストロサイト、O4 陽性オリゴデンドロサイトへと問題なく分化した(図 S1C)。
iNSC への変換に伴う老化形質の長期的な消失
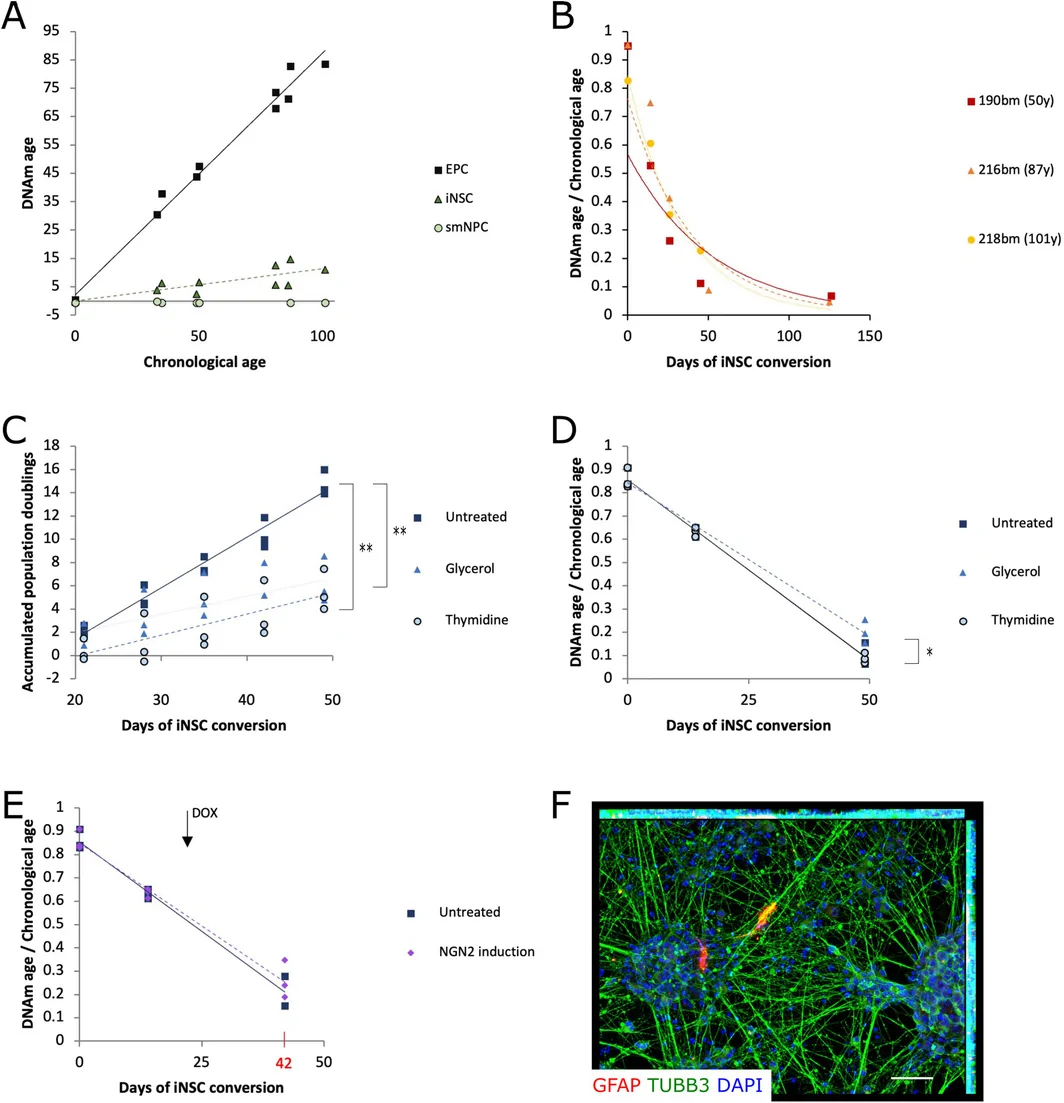
まず Horvath ら(2018)が発表した DNAm 年齢予測アルゴリズムを使い、拡大したコホートのエピジェネティック年齢を評価した。サンプルには由来 EPC、低継代 iNSC、iPS-NSC が含まれる。予想どおり、EPC の DNAm 年齢は各ドナーの実年齢と強く相関し、この年齢予測アルゴリズムが正確であることが確認できた。既報と一致して、すべての iPS-NSC 細胞株はドナーの年齢にかかわらず胚様のエピジェネティック年齢を示した。興味深いことに、iNSC にも顕著なエピジェネティックな若返りが見られ、しかもそれはすべてのドナー年齢層にまたがっていた。低継代 iNSC の DNAm 年齢は、平均で各ドナーの実年齢のわずか 13% だった(図 2A)。この結果は異なる年齢のドナーで再現できたため、次に血液から iNSC への転分化の過程で老化関連形質が時間とともにどう変化するかを調べた。ドナー年齢が 50 歳から 101 歳の 3 つの iNSC 細胞株について DNAm 年齢の動態を追跡すると、このエピジェネティックな若返りは大部分が長期にわたる過程で、数週間続くことがわかった。iNSC への変換にはおよそ 50 日を要し、そこでようやく老化関連のエピジェネティック形質の大部分がリセットされる(図 2B)。
DNAm年齢の差が必ずしも機能面で生物学的年齢に影響するとは限らないが、私たちは引き続き、通常老化と関連する細胞マーカーを調べた。具体的には、異なる実験で、異なる年齢のドナー(0歳、87歳、101歳)由来の樹立済み・無導入遺伝子(TF)iNSCを、その同系iPS-NSCと比較し、これらのiNSCに細胞老化マーカーが存在しないことを確認した。まず、老化と負に相関する核ラミン関連のLMNBとLAP2α(Scaffidi and Misteli 2006;Shah et al. 2013)は、両細胞型および全年齢群で同様に発現していた。老化関連遺伝子RANBP17、LAMA3、PCDH10(Mertens et al. 2015)、および老化関連遺伝子CDKN1aとCDKN2aも、若年および高齢ドナー由来のiNSCとiPS-NSCで同様に発現していた(図S2A)。老化時のLMNA/C発現の定性的変化は、発現量の絶対差よりもよく研究されているが、LMNA/Cの発現はiNSCで同系iPS-NSCより高く、若年ドナー由来細胞で高齢ドナー由来細胞より高い傾向にあった——この傾向はRNAとタンパク質の両レベルで観察された(図S2A、B)。次に、p62量とLC3変換のWestern blot解析により、iNSCのオートファジーは損なわれていないことが示された(図S2C)。最後に、iNSCとiPS-NSCにおけるDNA損傷とミトコンドリアROS産生は概ね同等であった(図S2D、E)。まとめると、これらのデータは、極めて高齢のドナー由来のiNSCであっても、直接変換後にはエピジェネティックおよび細胞レベルで脱老化し、胚段階様のiPS-NSCと高度に類似することを示している。
iNSC変換過程のエピジェネティック脱老化は幹細胞増殖に依存しない
体細胞の自己複製型iPSCへのリプログラミング(Lo Sardo et al. 2017)および増殖性iNSCへの直接変換では、老化関連エピジェネティック特徴の喪失が観察される一方、有糸分裂後ニューロンへの転分化では観察されないことから(Huh et al. 2016)、エピジェネティック脱老化は幹細胞の持続的な分裂活性によって駆動される可能性があると考えた。そこで、3名の高齢ドナー(81~86歳)由来の細胞を用いて、iNSC増殖を操作する2組の実験を行った。まず、変換14日目から、多くの細胞型で増殖を低下させることが知られているグリセロール、またはチミジンでiNSCを処理した。チミジンは細胞を細胞周期のG1/S期で停止させるため、細胞周期同調試薬としてよく用いられる。作用機序は異なるが、どちらの処理も変換49日目における累積集団倍加数を有意に減少させた(図2C)。しかし、グリセロール処理培養もチミジン処理培養も、相対DNAm年齢は未処理培養と有意に異ならなかった。ただし、グリセロール処理培養の相対DNAm年齢はチミジン処理培養よりわずかに、統計的に有意に高かった(図2D)。
続いて、変換7日目に、ドキシサイクリン誘導型NGN2発現系を搭載したレンチウイルスでEPC由来iNSCを感染させた。NGN2の強制誘導はヒトNSCを迅速にニューロンへ分化させることが知られている(Ho et al. 2016)。さらに14日間増幅した後、感染細胞の一部は増殖状態を維持し、残りは分化促進条件下でDOX誘導を受けた。変換42日目(分化20日後)において、NGN2を過剰発現した分化培養の相対DNAm年齢は、増殖中のiNSCと有意に異ならなかった(図2E)。ただし、NGN2の強制過剰発現により分化した培養は、主にTUBB3陽性ニューロンと少数のGFAP陽性アストロサイトから構成されていた(図2F)。まとめると、これらのデータは、iNSC変換過程のエピジェネティック脱老化が長い過程であり、持続的な細胞増殖に依存しないことを示している。
iNSCアイデンティティの長い確立過程
次に、iNSC変換過程のDNAm変化をより大規模に評価し、本プロジェクトでプログラミングして樹立した細胞株のデータに加え、以前に発表した研究(Sheng et al. 2018)で作製・公開されたデータも含めた。合計で、12名のドナー由来のEPCおよびその派生低継代(LP;P3~P5)iNSC細胞株のDNAmデータを組み入れた。一部のドナーについては、iNSC変換早期に採取したサンプル、すなわち変換14日目(N = 6)および26日目(N = 4)に新たに出現した神経上皮様培養物、ならびに長期培養後の無導入遺伝子iNSC(TF;P21;N = 3)も含めた。生データのフィルタリング後、これら37サンプル中の728,674プローブを比較した。EPCと14日目iNSCは多次元尺度構成図で2つの明確に異なるクラスターを形成し(図3A)、より遅い時点で採取したサンプルは互いにかなり類似していた。次に、有意な最可変部位(MVP;Benjamini-Hochberg補正p < 0.05)を遺伝子にマッピングし、変換過程の各時点比較で共通して影響を受ける部位の数を評価した(図3B)。続くReactomeパスウェイ解析により広範なパスウェイスペクトルが明らかになり、その大半は5つのカテゴリーのいずれかに分類できた:(i)神経系、特にニューロン移動、神経突起伸長、軸索誘導;(ii)細胞外マトリックス(ECM)および間葉-上皮転換(MET)関連パスウェイを含む、さまざまな組織における細胞移動、接着、分裂;(iii)シグナル伝達;(iv)血管新生;(v)造血系(図S3)。シグナル伝達と造血系を除き、残る3カテゴリーの項目はiNSC変換の全段階で制御されていた。続いて、同定した差異メチル化領域(DMR;FDR < 0.05)に対して直接遺伝子セット富化解析を行った。注目すべきことに、iNSC変換およびin vitro培養の全段階で共通して富化された45の遺伝子オントロジー(GO)項目のうち、14項目が「神経発生」「軸索発生」「ニューロン突起形態形成」など神経系発生に関連していた(表S2)。この解析では、形態形成、細胞骨格、シグナル伝達関連の項目も、残りの共通制御GO項目の大半を占めていた。
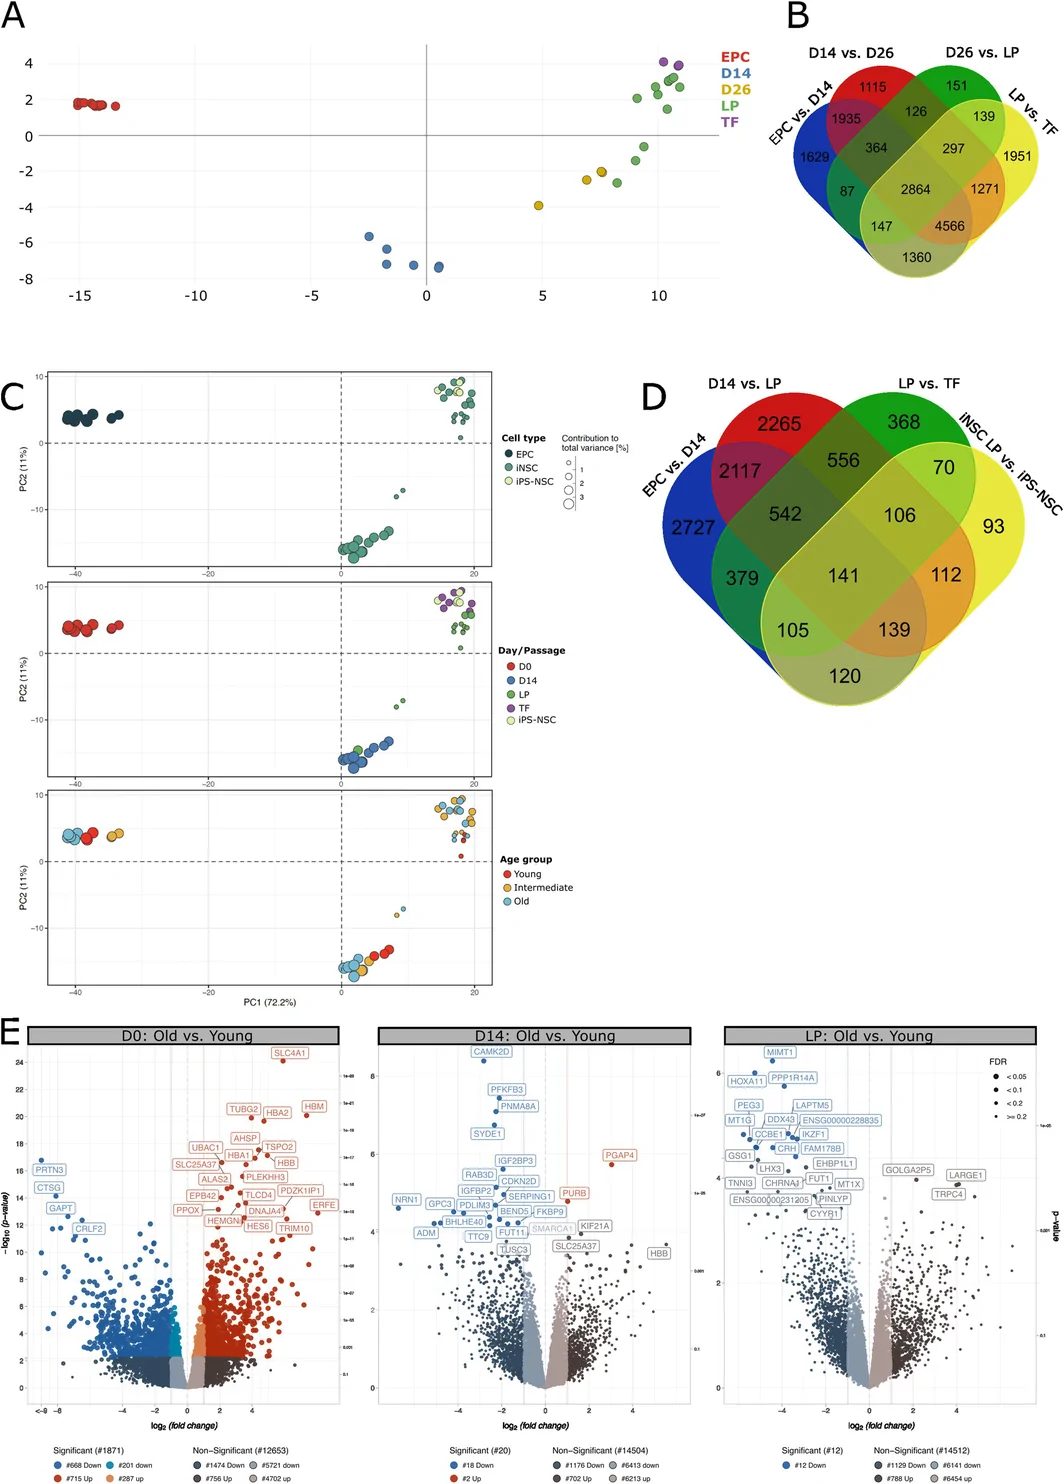
DNAm解析と同様に、iNSC化の過程におけるトランスクリプトーム全体の変化も評価した。具体的には、EPCサンプル12個、Day 14 iNSCサンプル10個、LP(P4–P6)iNSCサンプル14個、TF(P18–P21)iNSCサンプル7個を解析に含めた。さらに5名のドナーについては、LP(P6)段階の相同iPS-NSCサンプルを参照として加えた。このRNAシーケンスデータセットに対して主成分分析(PCA)を行うと、EPCサンプルはすべて独立したクラスターを形成し、iNSCサンプルは2つの主要クラスターに分かれた。一方のクラスターは主にDay 14 iNSCで構成され、もう一方はLPおよびTF iNSCで構成され、後者はiPS-NSCと混在していた(図3C)。具体的には、EPCとDay 14 iNSC、およびDay 14とLP iNSCを比較すると、iNSC化の初期にそれぞれ6270個と5978個の遺伝子が変化していたのに対し、LPとTF iNSCの比較では2267個の遺伝子のみが発現変動を示した(図3D)。
注目すべきことに、全ドナーを若年(0歳)、中年(31–50歳)、高年(62–101歳)のドナー年齢群に分けると、PCAでは若年・中年・高年のドナーがEPC段階ではわずかに分離しているものの、iNSC化の後期段階では次第に混ざり合うことがすでに認められた(図3C)。iNSC化の各解析時点について年齢群間のDEGを調べたところ、形質転換0日目の起始血球細胞では、若年ドナーと高年ドナーの間で1871個の遺伝子の発現が有意に異なっていた。しかし、形質転換14日目およびLP段階では、年齢群間で発現が異なる遺伝子はそれぞれわずか20個と12個であった(図3E)。この観察結果は、異なる年齢のドナー由来細胞が形質転換の過程で時間とともにトランスクリプトーム上ますます類似してくることを示している。ただし、特に若年ドナー群のサンプルサイズが小さいこと(N = 3)はここで指摘しておかねばならない。加えて、若年ドナー群には新生児のみが含まれるのに対し、他の2群は2〜4十年にまたがっている。これらの要因はいずれも比較にバイアスをもたらし、統計的検出力を制限する可能性がある。
iNSC化の過程で見られる主要なトランスクリプトーム変化は、観察されたエピジェネティックな「若返り」現象では説明できないため、最後にiNSC化の異なる段階間で変化した遺伝子についてGOタームの富化解析(過剰表現解析)を行った。解析の結果、iNSC化の最初の14日間に上昇および低下した遺伝子は、それぞれほぼ神経系譜とDNA複製・修復にのみ関連していた(図4A)。その後、14日目からLPにかけて翻訳関連遺伝子が低下しており、血球からiNSCへの運命転換に伴うプロテオーム変化の大部分はLPより前にすでに完了していることが示唆される。上昇遺伝子では、上位10個のGOタームのうち6個が神経系に関連していた(図4B)。LPからTF段階にかけては、翻訳に加えてウイルス応答関連遺伝子も低下しており、この時期の高温処理によるSeVトランスジーンの除去と一致する。一方、上昇遺伝子に対応する上位10個のGOタームのうち、依然として5個が神経系に直接的または間接的に関連していた(図4C)。
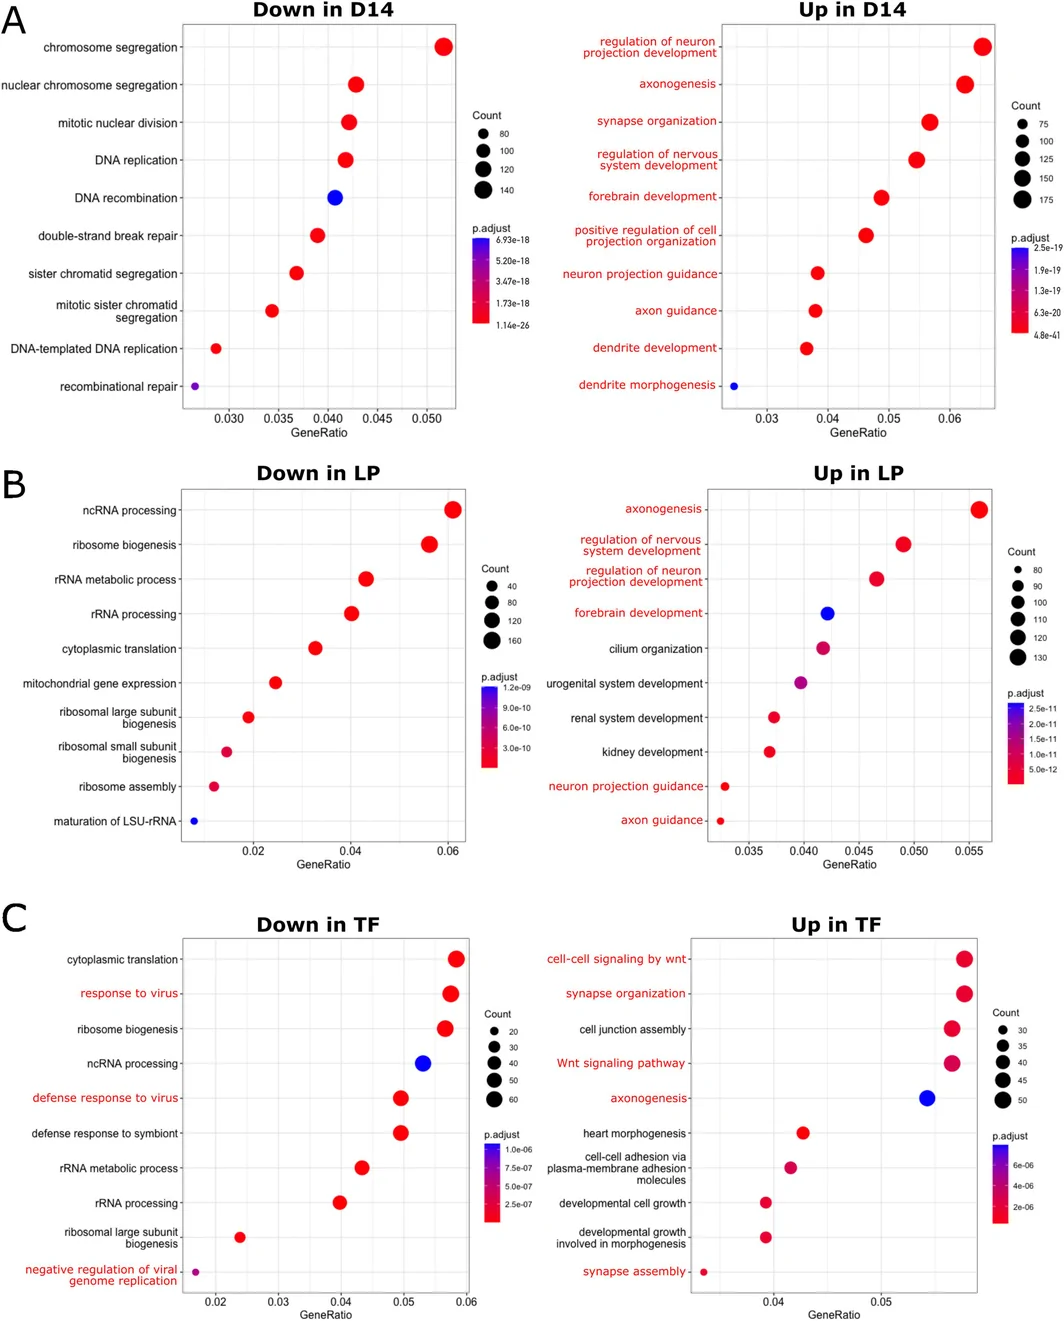
要するに、これらのデータは次のことを示している。SeV感染後数日以内にNSCに特徴的な形態が現れ、特徴的なNSCマーカーが発現するものの、転写産物レベルとエピジェネティックレベルで細胞アイデンティティが完全に固まるまでには、血液からNSCへの運命転換が始まってから数週間を要する。
考察
分化後期まで続く、深く持続的なエピジェネティックな若返り
我々の結果は、末梢血由来EPCを直接iNSCへ転換すると、顕著なエピジェネティックな若返りが起きることを示している。SOX2とcMYCの一過性過剰発現によって作製したiNSCのDNAm年齢は、0歳から101歳のドナーから採取した元の血球の5%未満だった。意外なことに、このエピジェネティックな若返りは大部分が持続し、iNSC転換の最初の50日間を通じて続いた。
古典的なiPSCリプログラミングでもエピジェネティックな若返りは観察され、約20日以内に完全なリセットが完了する(Gill et al. 2022; Olova et al. 2019)。しかしiNSC転換では、この過程のダイナミクスはずっと遅く、個々のドナー細胞株でエピジェネティックな若返りレベルが実年齢の約20%まで下がるにはおよそ7週間を要した。強調しておきたいのは、DNAm年齢は生物学的年齢の代替指標と考えられているものの、生物学的老化に関わる全体像、とりわけ機能面を捉えられないのは明らかだという点である。そのため、in vitroのリプログラミング研究では、この限界を補うために一部の細胞老化マーカーの解析が行われている(Studer et al. 2015のレビューも参照)。この考え方に沿って我々は、増殖可能な細胞集団として確立さえすれば、非常に高齢のドナー(87〜101歳)由来のiNSCであっても、核ラミナの変化、オートファジーフラックスの障害、ミトコンドリア機能の低下といった古典的な加齢関連の細胞変化や、老化マーカーが見られないことを示した。これらの性質はいずれも同遺伝子のiPS-NSCと同等であり、iPS-NSCはそのiPSC由来ゆえに細胞年齢関連マーカーを欠くと見なせる。総合すると、これらのデータはiNSC転換で生じた細胞が老化の特徴を帯びていないという我々の結論を裏づけている。
興味深いことに、転写因子に直接基づく神経転換におけるエピジェネティックな若返りは、本稿で報告したSOX2/cMYC法に限らないようだ。この分野の文献を調べるなかで、我々はThierら(2019)の仕事に注目した。彼らはBRN2、KLF4、ZIC3、SOX2を用いてヒト線維芽細胞を神経板境界幹細胞(NPBSC)へ転換している。我々は2種類の異なるDNAm年齢計算アルゴリズム(Horvath 2013;Horvath et al. 2018)で彼らの公開DNAmデータを解析し、中年と予測されたヒト線維芽細胞(それぞれ46〜48歳と33〜38歳)から得られたNPBSCの年齢が大きく巻き戻っている(それぞれ1〜2歳と0.4〜0.8歳。データ未掲載)ことを見出した。つまり、血液からiNSCへの転換だけでなく、ヒト線維芽細胞からNPBSCへの転換にもエピジェネティックな若返りが伴う。両転換パラダイムの唯一の共通点がSOX2の過剰発現であることを踏まえると、この転写因子は体細胞の若返りの文脈でさらに研究する価値があるかもしれない。ただし、Mycの発現を細胞老化と結びつけた研究もあることは留意に値する(Neumann et al. 2021)。
注目すべきは、新たに生じたiNSCを増殖抑制的な培養条件に置いても(すなわちグリセロールやチミジンで処理する、あるいは分化促進培地条件下でNGN2を過剰発現させる)、エピジェネティックな若返りは持続的増殖培養と同程度に進行し続けた点である。iNSC由来の分化培養が起始EPCのDNAm年齢を完全に保つとは予想していなかったが、増殖がDNAm年齢リセットの主要な駆動力なら、増殖培養と分化培養の間に差を検出できたはずだ。我々が当初そう仮定したのは、iPSCへのリプログラミングもiNSCへの転換も増殖を伴う一方、中間の増殖ステップを経ずに転写因子で直接ヒト線維芽細胞をiNへ転換するとエピジェネティック年齢が保たれるからである(Huh et al. 2016)。分化中の神経培養でエピジェネティックな若返りが続くことは、この過程が細胞運命の転換とは独立していることをさらに示唆する。この点で、我々の転分化システムは、体細胞における加齢関連特徴の逆転を駆動する要因の解明に今後の研究を集中させるための設計図として使えるかもしれない。ただし、Mycの発現が——外因性の過剰発現でなく内因性の誘導であっても——線維芽細胞からiPSCへの運命転換に不可欠な生合成過程に必要であることが示されているため(Zviran et al. 2019)、今後の研究では、非増殖性の体細胞システムであっても、導入遺伝子の残存や内因性の転換因子の誘導発現が及ぼす影響を慎重に扱う必要がある。
iNSCのDNAmと転写産物特徴の長期的な固化
転換過程におけるDNAm変化の質を調べると、制御を受けるパスウェイの大半は、神経系、血液、細胞形態形成、細胞骨格に関連する分類か、遊走、接着、分裂、シグナル伝達を含む細胞機能に関わるものだった。転換過程には間葉系細胞集団から上皮様細胞集団への移行——自由に動く血液前駆細胞が、接着性を持つ神経上皮細胞集団へ転分化する——が含まれることを考えれば、細胞形態、接着、遊走といった分類が変化するのは予想の範囲内である。だが再び意外だったのは、これらの変化がiNSC転換のほぼすべての段階に及び、iNSCが導入遺伝子を除去して長期に増殖した後まで続いたことだ。
転写産物レベルでも、変化は同様に長く続いた。初期の神経運命へのコミットメントを示す特徴は主に最初の2週間で確立し、この時点で新たに生じたiNSCは安定して増殖するPAX6およびDACH1陽性状態に達していた。しかし、さらなる神経成熟の前提と見なされる軸索発生やシナプス組織化といったカテゴリーは、非常に後期の導入遺伝子なしの段階まで上昇し続けた——細胞が一貫して増殖促進的な培養条件下にあったにもかかわらず、である。Wntシグナル伝達経路など他の差次的発現遺伝子クラスターは、特定の培養条件がこの経路を促進することに部分的に由来するのかもしれない。LP段階からTF段階への移行時のウイルス応答の特徴も同様で、これはSeVの除去と符合する。総合すると、我々のデータは、EPCからNSCへのプログラミングにおいて運命の獲得と固化が予想外に長く、しかもエピジェネティックな若返りの延長を伴うことを示している。
この文脈で注目すべきは、RNA シーケンスデータの主成分分析が、SOX2/cMYC の過剰発現が始まる前においてのみ、若齢・中間・老齢ドナーをトランスクリプトームに基づいて区別できることを示した点である。われわれの解析は比較的小さい群サイズに制約され、観察された運命転換に伴う変化(その強度ははるかに大きい)が脱老化に関連する変化を覆い隠した可能性も排除できないが、この観察は、トランスクリプトームの脱老化がエピジェネティックな特徴の喪失よりも速やかに達成される可能性、およびトランスクリプトームの変化が主としてエピジェネティックな変化ではなく過剰発現した転写因子そのものによって誘導される可能性を示唆するかもしれない。汎哺乳類・汎組織のエピジェネティック老化マーカーに関する最近の研究では、GO ターム「神経系発生」が老化と正に相関する CpG 部位に高度に有意であることが見出された(Lu et al. 2023)。さらに、年齢と正および負に相関する CpG 部位はいずれも SOX2、MYC、OCT4 の標的に濃縮されていた(Lu et al. 2023)。この関連は、例えば神経転換の異なる段階における細胞アイデンティティと年齢に対する導入遺伝子抑制の影響を検討するなど、さらなる注意深い研究に値する。
SOX2/cMYC 誘導性の転分化とエピジェネティック脱老化:互いに独立した過程か、それとも前多能性段階の証拠か?
より大きな文脈で見れば、SOX2 と cMYC はいずれも iPSC リプログラミングの重要な構成要素であり、「部分的」または「中断された」リプログラミングは、老化形質を消失させ機体を再生させるために、多数の in vitro および in vivo 実験で用いられてきた(レビューとして Puri and Wagner 2023;Simpson et al. 2021;Singh and Zhakupova 2022)。注目すべきことに、30 か月齢マウスの尾先端線維芽細胞から転換された iNSC が、DNAm 年齢のリセットの程度において極めて大きくばらつくことが最近報告された。工学的に改変した Sox17(eSox17FNV)変異体を過剰発現させ、Klf4 ± Brn2 および cMyc と組み合わせたところ——この組み合わせは Sox2 による転換と同じ機構、すなわち古典的 SoxOct モチーフ上で Brn2 と二量体化する機構に収束することが示されている——線維芽細胞由来 iNSC の DNAm 年齢は 6.9 か月から 27.9 か月の間に分布した(Weng et al. 2023)。つまり、一部のクローン系は元の細胞の加齢関連 DNAm 特徴の大部分を保持しているように見え、他のクローン系は転換の過程でエピジェネティック脱老化を経験していた。興味深いことに、著者らは、Klf4 と eSox17FNV の 2 因子組み合わせに cMyc を加えることで、細胞が Oct4 陽性・Nanog 陰性の前多能性状態へ移行しやすくなる可能性を提唱している(Weng et al. 2023)。しかしこの研究は、前多能性段階を経る転換がエピジェネティック脱老化と関連するのか、あるいは後者に必要ですらあるのかを検討していない。
われわれの以前の結果は、SOX2/cMYC 誘導性 iNSC に多能性転換が起こる証拠を示さなかった(Sheng et al. 2018)。とはいえ、現在の RNA シーケンスデータで腎臓、泌尿生殖器系、心臓の特徴が検出されたことは、部分リプログラミングの概念と矛盾しない——培地条件が最終的に細胞を神経運命へと導くのである。ただし注目すべきは、これらの特徴が低継代時に中間レベルで調節されていたこと、つまり転換の最初の数週間には現れておらず、多能性転換が存在するならまさにそこで起こると予想される時間窓に現れていない点である。さらに、iPSC のリプログラミングと転写因子媒介性の分化の過程、および線維芽細胞から iNSC への直接転換の過程でも、異常な運命の出現が観察されている(Deng et al. 2021; Lin et al. 2021; Treutlein et al. 2016)。したがって、既存のデータは iNSC プログラミングにおける多能性転換を支持しないものの、新たに生じた iNSC がどの程度多能性に近いのか、そしてその近さが観察されたエピジェネティック脱老化現象にどの程度必要とされるのかを確定するには、単一細胞分解能の精密な長期研究が依然として必要である。われわれは実際に、同一ドナー由来の異なる細胞系の間で DNAm 年齢に一定程度の不均一性を観察している(例えば、多クローン性細胞系と単一クローン由来細胞系の比較)ため、この種の研究はさらに、エピジェネティック脱老化の過程における個々の細胞の振幅と動態の差異、および iNSC 培養物の脱老化が DNAm 年齢の減衰が特に速い優位クローンの増殖に部分的に由来するかどうかを明らかにできる。
われわれのモデル系の限界
前多能性状態が関与するかという問題とは別に、明確に認めなければならないのは、運命転換そのものがエピジェネティックな帰結をもたらし、DNAm 年齢の算出に影響して、iNSC 転換におけるエピジェネティック脱老化に関するわれわれの結論を偏らせる可能性を排除できないことである——なぜなら「真に老化した」NSC 細胞集団が存在せず、それに基づいて参照データセットを生成できないからである。これは特に重要である。神経組織の DNAm 年齢は実際の年齢よりも系統的に低いと報告されている一方、血液ではそうではないため(Horvath et al. 2018)、この系で観察されたエピジェネティック脱老化の真の振幅がさらに歪められている可能性がある。
転換系におけるもう一つの潜在的交絡因子は、O2 濃度の変動である。転換 35 日目まで、つまり低継代で iNSC をサンプリングする約 1 週間前まで、細胞は低酸素(5% O2)条件下で培養されていた。しかし細胞は低酸素チャンバー内で操作されたわけではないため、培地交換や継代の際など、断続的に短時間の常酸素期間が生じた。35 日目以降、細胞は大気酸素濃度(21% O2)下で恒久的に培養された。低酸素は HIF1α、SIRT1、AMPK、NFκB などの因子に影響を与えることを通じて、ミトコンドリア機能、オートファジー、炎症など、同じく老化過程に関与する機構に対して深遠な細胞・分子レベルの効果を及ぼすことが知られている(レビューとして Yeo 2019)。一方で、低酸素培養条件(5% O2)は組織環境により近いと見なすことができ、in vitro の哺乳類 NSC の生存と幹細胞性を促進することが示されている(レビューとして Mannello et al. 2011)。さらに、加齢関連 DNAm 特徴の大部分は iNSC 転換 26 日目の時点ですでに再形成されており、それ以前は iNSC は 5% O2 条件下で培養されていた。しかし、35 日目以前の酸素レベルの短時間の変動、およびその後の大気酸素濃度への切り替えが、観察されたエピジェネティック脱老化現象に寄与した可能性を排除することはできない。
結論
以上のように、転写因子を用いたヒト血液細胞の形質転換において、NSC 運命の固定と(エピジェネティックな)脱老化はいずれも時間のかかる過程であることが示された。この数週間にわたる時間枠は、両過程を区別し、体細胞のエピジェネティックな脱老化を駆動する因子を明らかにするための機構研究に独特の機会を提供するかもしれない。この点で、我々の形質転換系は、細胞の脱老化という文脈における部分的あるいは中断された iPSC リプログラミングの代替手段としても利用できる。
著者貢献
L.J.B.、C.S.、M.P.、A.T.、W.W.、O.B. が本研究を構想・設計した。L.J.B.、R.K.、C.S. が細胞培養実験を行った。L.J.B.、J.F.、A.B. がデータを解析・整理した。L.J.B.、A.B.、M.P.、A.T.、W.W.、O.B. がデータを解釈した。L.J.B. と O.B. が原稿を執筆した。全著者が原稿の最終版を読み、承認した。
資金
本研究は Horizon 2020 枠組み計画(874758)、Deutsche Forschungsgemeinschaft(CRU344/417911533、SFB 1506/1)、および Bundesministerium für Bildung und Forschung(01EK1603A-Neuro2D3)の支援を受けた。
倫理声明
健康なドナーからヒト体細胞材料(すなわち血液)を採取し、iPSC リプログラミングおよび iNSC 形質転換に用いたことは、ドイツ法に従い、ボン大学医学部倫理委員会の承認(承認番号 275/08)を得て実施した。全被験者から書面によるインフォームドコンセントを取得した。
利益相反
J.F. は現在、バイオインフォマティクスサービスを提供する Pryzen UG の創業者、株主、兼 CEO である。W.W. は、他の研究者にエピジェネティック解析サービスを提供する Cygenia GmbH の共同創業者である(www.cygenia.com)。O.B. はボン LIFE & BRAIN GmbH の共同創業者かつ株主である。その他の著者に開示すべき利益相反はない。
補足情報
謝辞
Cornelia Thiele と Melanie Bloschies には卓越した技術支援を、Christian Felski にはデータ解析における助力をいただいた(いずれもボン大学病院再建神経生物学研究所)。被験者の募集と採血にご協力いただいた Ullrich Wüllner(ボン大学病院神経病学センター パーキンソン病・睡眠・運動障害科、およびボン独国神経変性疾患センター(DZNE))、Anja Schneider(ボン大学病院老年精神医学・認知障害科および DZNE)、Waltraut Merz(ボン大学病院産科・出生前医学科)に感謝する。rtTA TRE 制御 NGN2 用のレンチウイルスおよびレンチウイルスプラスミドは Laura Stappert(元ボン大学再建神経生物学研究所)から恵与された。ボン大学医学部次世代シーケンシングコアプラットフォームおよびバイオインフォマティクスデータ解析コア部門には、ドイツ研究振興協会(DFG)の資金による支援と機器提供をいただいた。また、ボン大学病院神経病理学部門、とりわけ Alexandra Brüggemann には細胞懸濁液の免疫細胞化学における助力をいただいた。最後に、Michael Ziller(ミュンスター大学精神医学部門)には本プロジェクト中の示唆に富む議論に感謝する。本研究は以下の支援を受けた。EU「ホライズン2020」研究・イノベーション計画(助成契約番号 874758 NSC-Reconstruct、O.B. に交付)、DFG(助成プロジェクト CRU344/417911533 および SFB 1506/1、W.W. に交付)、ドイツ連邦教育研究省(助成プロジェクト 01EK1603A-Neuro2D3、O.B. に交付、VIP+ PluripotencyScreen、W.W. に交付)。オープンアクセス費用は Projekt DEAL が提供・運営した。
データ可用性声明
Thier et al. (2019) が発表した DNA メチル化データセットは登録番号 E-MTAB-5808 で ArrayExpress から入手できる。本論文で報告したデータの登録番号は GSE295849(DNA メチル化データ、GEO から入手可能、査読者アクセストークン:glqriiuyvvudpsp)および phs004047.v1.p1(RNA シーケンシングデータ、dbGaP から入手可能)である。