人类血细胞诱导神经干细胞转化过程中的持久命运获得与表观遗传去衰老
将血细胞直接转化为神经干细胞会重置其表观遗传时钟,而这项研究表明这种重置是缓慢的,在增殖性神经干细胞出现后仍持续数周,甚至在增殖被阻断时也是如此。
中文
复制
摘要
基于转录因子的体细胞直接转化,为从外周血生成诱导神经干细胞(iNSC)提供了一条有意思的路径,且无需经过多能性阶段。这一范式已被证明伴随表观遗传去衰老,但该过程的动态变化仍不清楚。本研究通过过表达两个重编程因子 SOX2 和 cMYC,从新生儿至 101 岁供体的红系祖细胞生成 iNSC。借助表观遗传衰老时钟算法,我们证实了此前的发现:衰老供体来源的 iNSC 表现出显著的表观遗传去衰老,在低传代和高传代时分别保留约 13% 和 5% 的原始供体年龄。通过追踪 iNSC 转化过程中表观遗传去衰老随时间的变化,我们发现这一过程在很大程度上是长期的,可持续数周,甚至在抑制增殖的条件下依然进行。年轻与年老供体来源的 iNSC 之间的转录组差异,也随转化时间延长而消失。与这一观察一致,已建立的 iNSC 系缺乏与年龄相关的细胞特征,与诱导多能干细胞及其衍生细胞类似。值得注意的是,DNA 甲基化与 RNA 测序数据的时间进程分析显示,真正 NSC 特征的获得远远超出增殖性 PAX6 阳性 iNSC 出现的时间点。这些过程出乎意料的缓慢动态,使 iNSC 转化成为剖析体细胞转分化和表观遗传去衰老机制的理想模型。
关键词: 衰老、细胞重编程技术、表观遗传学、神经干细胞
引言
细胞编程的兴起——涵盖所有旨在操控细胞身份的技术,包括诱导多能干细胞(iPSC)重编程以及直接细胞命运转化——极大地促进了人类神经细胞的衍生,用于疾病建模和再生细胞替代等应用。转录组和表观遗传特征的显著重塑事件在细胞编程过程中发挥关键作用。然而,这些过程的动态变化及其潜在机制仅被部分了解。在 iPSC 重编程过程中,全基因组重塑被诱导,首先导致源细胞转录程序的沉默,随后是瞬时增强子的激活,最终上调 Sall4、Nanog 和 Dppa2 等多能性相关基因,这些基因启动、成熟和/或稳定所获得的多能性状态(Buganim et al. 2013; Deng et al. 2021)。直接转化为有丝分裂后诱导神经元(iN)——最早通过在小鼠成纤维细胞中过表达转录因子组合 Ascl1、Brn2 加 Myt1l 成功实现(Vierbuchen et al. 2010)——为生成神经细胞提供了一条更直接的途径,无需多能性中间态。
有趣的是,iPSC 重编程与直接转化为 iN 对多种衰老特征的影响截然不同:若以基于 DNA 甲基化(DNAm)的算法评估生物学年龄(Horvath 2013;Horvath et al. 2018),iPSC 重编程会将其逆转至胚胎阶段(Horvath 2013;Lo Sardo et al. 2017;Weidner et al. 2014),而 iN 则保留源细胞的 DNAm 年龄(Huh et al. 2016)。值得注意的是,DNAm 年龄只能视为生物学年龄的替代指标,因为它并非对衰老相关细胞(功能)障碍的直接测量。不过,iPSC 与 iN 在衰老相关细胞特征上的差异化保留,也体现在端粒长度、线粒体健康、核组织以及转录衰老特征的程度等方面(Kim et al. 2018;Lapasset et al. 2011;Mertens et al. 2015;Miller et al. 2013;Prigione et al. 2011;Tang et al. 2017;Yang et al. 2015)。
2011年,Kim等人提出了将体细胞直接转化为仍具增殖能力的诱导神经干细胞(iNSC)的构想(Kim et al. 2011)。最初的做法是在小鼠成纤维细胞中过表达用于iPSC重编程的全套转录因子,即Oct4、Sox2、Klf4和c-Myc;此后已有多个研究组发表了在人类细胞中使用精简和/或调整后转录因子组合的方案(综述见Flitsch and Brüstle 2019)。在此前的一项研究中(Sheng et al. 2018),我们发现,易于获取的人PBMC来源红系祖细胞(EPC)只需通过Sendai病毒(SeV)介导过表达SOX2和cMYC这两个转录因子,即可转化为克隆性生长的iNSC。iNSC具有三向分化能力,其神经元分化可进行区域模式化,并可用于疾病建模和神经移植。事实上,iNSC来源的神经元在体外和体内成熟后均表现出电生理功能(Berg et al. 2024; Sheng et al. 2018)。我们还进一步证明,iNSC总体上与iPSC来源的NSC相似,不仅转录组特征相近,表观遗传和细胞年龄相关特征也相近(Sheng et al. 2018),但细胞身份与年龄特征在转化过程中如何被重塑,这一问题尚未得到解答。本研究旨在一方面探究细胞命运转化的动态过程,另一方面探究衰老特征的丢失。为此,我们从新生儿到高龄供体的血液中构建并表征了同基因配对的iNSC与iPSC来源NSC,覆盖了人类整个生命周期。随后,我们通过在整个转分化时间过程中进行DNAm和RNA测序分析,剖析了血液向iNSC转化的过程。出乎我们意料的是,结果显示这两个过程——表观遗传去衰老(我们将其定义为根据Horvath et al. (2018)发表的表观遗传时钟算法结果所得到的表观遗传年龄降低)与细胞命运固化——在很大程度上都进展缓慢,表观遗传去衰老甚至在抑制增殖的条件下仍在继续。
方法
细胞培养技术
EPC 诱导
外周血单个核细胞(PBMC)取自新鲜采血,使用 vacutainer CPT 管(BD Bioscience,San Jose,USA)分离,1800 rcf 离心 30 分钟。分离得到的单个核细胞用 1× DPBS(Thermo Fisher Scientific,Waltham,USA)洗涤两次,随后将 3–5 × 10⁶ 个 PBMC 冻存于 90% FCS(Thermo Fisher Scientific)加 10% DMSO(Sigma-Aldrich,St. Louis,USA)中,或直接重悬于 EPC 培养基中进行后续 EPC 诱导。EPC 培养基由 StemSpan SFEM(Stemcell Technologies,Vancouver,Canada)添加 1% CD Lipid(Thermo Fisher Scientific)、2 U/mL 重组人(rh)促红细胞生成素(Bio-Techne,Minneapolis,USA)、100 ng/mL rhSCF(Bio-Techne)、40 ng/mL rhIGF1(Bio-Techne)、1 μM 地塞米松(Sigma-Aldrich)和 10 ng/mL rhIL3(Bio-Techne)配制而成。诱导按已发表的方案进行,并作了少量修改(van den Akker et al. 2010)。简言之,细胞在未包被的 6 孔细胞培养板中于 6% CO2、37°C 条件下培养。EPC 生成的第 1 至第 6 天,每天每孔新鲜补加 1 mL EPC 培养基。第 7 天,用密度为 1.075 ρ 的 Percoll(Sigma-Aldrich)密度梯度富集 EPC。离心后收集含 EPC 的中间相环。细胞洗涤两次,然后将 EPC 重悬于不含 rhIL3 的 EPC 培养基中,以 1–1.5 × 10⁶ 个细胞/6 孔的密度接种于未包被的 6 孔细胞培养板中继续成熟。富集后的 EPC 扩增至 EPC 生成的第 9 天,第 8 天补加培养基。第 9 天收集含 EPC 的细胞悬液,将 1–2 × 10⁶ 个细胞冻存于 90% 不含 rhIL3 但添加 10% DMSO 的 EPC 培养基中。
iPSC 重编程及向 NSC 的分化
EPC 用 DMEM/F12(Thermo Fisher Scientific)解冻。在 6% CO2、37°C 条件下孵育 1 h 后,将 3 × 10⁵ 个 EPC 分装至 15 mL 离心管中,1500 rpm 离心 5 min。弃上清,细胞沉淀重悬于 250 μL 不含 rhIL3 的 EPC 培养基中,其中含有稀释至感染复数(MOI)5:5:1 的 CytoTune 2.0(Thermo Fisher Scientific)SeV——即用于过表达 KLF4-OCT3/4-SOX2 的多顺反子载体,以及分别编码 cMYC 和 KLF4 的单载体。随后将含细胞与病毒的溶液转移至未包被的 4 孔板,在 6% CO2、37°C 条件下孵育约 24 h。次日收集感染后的细胞,1500 rpm 离心 5 min。弃去含病毒的上海,细胞沉淀重悬于 500 μL 不含 rhIL3 的 EPC 培养基中,接种于未包被的 4 孔板。iPSC 重编程第 3 天,收集细胞,1300 rpm 离心 5 min。弃上清,将细胞重新接种于铺有 Matrigel(Corning Inc., Corning, USA;用 DMEM/F12 按 1:60 稀释)的 10 cm 细胞培养皿中,使用不含 rhIL3 的 EPC 培养基。iPSC 重编程第 5 至 11 天,通过逐步提高 StemMACS iPS-Brew XF 浓度的部分换液方式,将培养基逐渐更换为 StemMACS iPS-Brew XF(含添加剂;Miltenyi Biotec, Bergisch Gladbach, Germany)。iPSC 重编程约第 20 天,在显微镜下手动挑取最多 24 个克隆,接种于铺有 Matrigel(用 DMEM/F12 按 1:60 稀释)的 24 孔板中,培养基为添加 10 μM Rock 抑制剂 Y-27632(Cell Guidance Systems, Cambridge, UK)的 StemMACS iPS-Brew XF。为消除 SeV 转基因,每周重复一次该操作,直至完成五轮单克隆挑取。第五轮挑取后,让细胞生长至汇合。达到汇合后,用 0.5 mM EDTA(Carl Roth, Karlsruhe, Germany)孵育 3 min 使细胞解离。弃去 EDTA,吹打使细胞脱落,并按脱落细胞数量接种至相应规格的培养器皿中。无转基因 iPSC 系常规扩增于铺有 vitronectin(Thermo Fisher Scientific;用 1× DPBS 按 1:100–1:200 稀释)的培养器皿中,使用 StemMACS iPS-Brew XF 培养,随后以 90% StemMACS iPS-Brew XF 加 10% DMSO 冻存。
为了从 iPSC 生成稳定的 NSC 群体,我们采用了参照 Reinhardt 等(2013)修改后的实验方案。首先,用 StemPro Accutase(Thermo Fisher Scientific)在 37°C 下孵育 5–15 分钟,将 iPSC 解离为单细胞。细胞悬液用 DMEM/F12 稀释后,以 1000 rpm 离心 5 分钟。随后,将 2 × 10⁶ 个 iPSC 重悬于 1xN2B27(DMEM/F12 与 Neurobasal 按 1:1 混合,含 0.5× N2 添加剂、0.5× 不含维生素 A 的 B27 添加剂、2 mM L-谷氨酰胺、0.0025% BSA 和 1× 青霉素/链霉素;所有试剂均来自 Thermo Fisher Scientific)中,并加入 3 μM CHIR99021(Miltenyi Biotec)、0.5 μM purmorphamine(Miltenyi Biotec)、10 μM SB431542(Axon Biotech,德国 Hengersberg)和 1 μM dorsomorphine(Tocris Bioscience,英国布里斯托),再补充 10 μM Y-27632,然后转移至按厂商说明预处理的 AggreWell 800 微孔培养板(Stemcell Technologies)。AggreWell 800 培养板以 300 rpm 离心 3 分钟。次日,用含 CHIR99021、purmorphamine、SB431542 和 dorsomorphine 的 1xN2B27 进行半量换液。iPSC 聚集成拟胚体约 48 小时后,小心地将其从 AggreWell 中剥离,转移至未包被的 6 cm 培养皿。一天后,将培养基更换为补充有 3 μM CHIR99021、0.5 μM purmorphamine 和 64 μg/mL LAAP(Sigma-Aldrich;以下称为 1xN2B27 + CPL)的 1xN2B27 培养基。在 NSC 生成第 4 天再次换液后,于第 5 天用 1 mL 移液管将拟胚体吹打成小碎片。将一个 AggreWell 中吹散的拟胚体分配到一整块 Matrigel 包被(用 DMEM/F12 按 1:60 稀释)的 6 孔细胞培养板中,接种于补充有 10 μM Y-27632 的 1xN2B27 + 青霉素/链霉素 + CPL 中。从这一天起,NSC 常规培养于 Matrigel 包被(用 DMEM/F12 按 1:60 稀释)的细胞培养器皿中,使用不含青霉素/链霉素的培养基。每 1 至 2 天换液一次,细胞长满后使用 Accutase 传代。传代比例通常为 1:4–1:12。在第 5 代之前,重新接种时均加入 10 μM Y-27632。
iNSC 转化与扩增
EPC 按 Sheng 等人(2018)发表的方法稍作修改后转化为 iNSC。转化第 0 天,按前述方法解冻 1.5 × 10⁵ 个 EPC,在不含 rhIL3 的 EPC 培养基中用 SeV-SOX2 和 SeV-cMYC(MOI 均为 5,二者均为 CytoTune 1.0 试剂盒(Thermo Fisher Scientific,现购自 ID Pharma,东京,日本)中的单载体 SeV)进行离心感染,条件为 1500 rcf、32°C、30 分钟。离心后,细胞沉淀重悬于原含病毒上清中,接种至未包被的 4 孔板。细胞置于 37°C、21% O2 的湿润培养箱中约 24 小时。次日收集悬浮细胞,1500 rpm 离心 5 分钟沉淀,重悬于 75% iNSC 转化培养基中。该培养基由 2× N2B27(Advanced DMEM/F12(Thermo Fisher Scientific)与 Neurobasal 按 1:1 混合,含 1× N2 添加剂、1× 不含维生素 A 的 B27 添加剂、2 mM L-谷氨酰胺和 0.0025% BSA)添加 3 μM CHIR99021、1 μM purmorphamine、0.5 μM A83-01(Tocris Bioscience)、10 ng/mL 人 LIF(Novoprotein,Fremont,美国)、64 μg/mL LAAP(Sigma-Aldrich)、1 μg/mL laminin(Sigma-Aldrich)和 5 μM tranylcypromine(Enzo Biochem Inc.,Farmingdale,美国)组成,另加 25% 不含 rhIL3 的 EPC 培养基,以约 1.3 × 10⁴ 个细胞/cm2 的密度接种到 Matrigel 包被的培养器皿(DMEM/F12 中 1:60 稀释)上。自该日起,转化中的细胞在 37°C、5% O2 下培养。转化第 3 天,加入由 75% iNSC 转化培养基加 25% 不含 rhIL3 的 EPC 培养基组成的培养基。自第 5 天起,新出现的贴壁 iNSC 在 100% iNSC 转化培养基中培养,每隔一天全量换液。第 10 至 11 天起,iNSC 在 iNSC 扩增培养基(2× N2B27 添加 3 μM CHIR99021、0.5 μM purmorphamine、0.5 μM A83-01、10 ng/mL 人 LIF 和 64 μg/mL LAAP)中培养。转化前 3 周内,在显微镜下挑取由神经上皮样形态细胞组成的克隆。为建立多克隆细胞系,转化第 21 天用 Accutase 按前述方法解离剩余克隆,合并后以约 1 × 10⁵ 个细胞/cm2 的密度接种到 Matrigel 包被的培养器皿(DMEM/F12 中 1:60 稀释)上。iNSC 细胞系每 1 至 2 天换液一次。细胞系每周至少传代一次,最好在细胞汇合度 > 100% 时用 Accutase 传代。典型传代比例为 1:3–1:9。转化第 35 天起,iNSC 在 37°C、21% O2 的常氧条件下培养。SeV 的清除通过将已建立的 iNSC 细胞系在 39°C 下长期培养(通常 4 至 7 周)实现。在此期间,每周用 RT-PCR 监测 SeV 介导的转基因表达。两种 SeV 的表达均低于 RT-PCR 检测限后,将细胞转回 37°C。一周后再次进行 RT-PCR,以确认 SeV 持续缺失。
在 EPC 向 iNSC 转化过程中,为调控增殖速度,从转化第 14 天起,细胞分别用 2%(v/v)甘油(Sigma-Aldrich)或 2 mM 胸苷(Sigma-Aldrich)处理。在此期间,iNSC 每周传代一次,每次传代时用 Neubauer 计数板(Paul Marienfeld,Lauda-Königshofen,德国)估算细胞数,以计算群体倍增数。每次换液时都向培养基中加入甘油,但在传代当天不加。胸苷处理始终在传代次日开始,转化第 2–5 周和第 6–7 周分别在处理 48 h 和 24 h 后停止。
通过 NGN2 过表达诱导 iNSC 分化
为在转化早期将 iNSC 快速分化为有丝分裂后神经元,采用了转录因子介导的正向编程方法。为此,在转化第 7 天,用两种慢病毒(1:50–1:80 稀释)感染 iNSC,分别编码反式四环素调控的反式激活因子(rtTA)和受四环素响应启动子元件(TRE)调控的 NGN2 表达盒。此后,iNSC 常规培养至转化第 21 天,此时以 8.3 × 10⁴ 个细胞/cm2 的密度重新接种。次日,通过将培养基更换为含 10 ng/mL BDNF、10 ng/mL GDNF、64 μg/mL LAAP、5 μM DAPT 和 1 μg/mL DOX 的 NGMC 来诱导正向编程。iNSC 的分化在常氧条件下进行,温度为 37°C,O2 浓度为 21%。从分化第 5 天到第 7 天,向分化培养基中加入 5 μM 阿糖胞苷/Ara-C(Merck Millipore),以杀死有丝分裂活跃的细胞。在为期 20 天的分化过程中,每周换液三次。
分子生物学技术
DNAm 分析
DNA 提取使用 Qiagen(德国希尔登)的 Blood & Tissue 试剂盒,按厂商说明操作。提取所得 DNA 的浓度与纯度用 Nanodrop 2000c 测定。进行 DNAm 检测时,DNA 样品用 AE 缓冲液(Qiagen)稀释至 55 ng/μL,送至波恩大学下一代测序核心平台。样品随后经亚硫酸氢盐转化,再在 Infinium MethylationEPIC 850 k 芯片(Illumina)上检测。原始数据在 R 环境(R Core Team 2019)中用 minfi 包(Aryee et al. 2014)处理。之后,用基于(Horvath 2013 和 Horvath et al. 2018)的预测算法,以得到的 beta 值计算样品的表观遗传年龄(也称 DNAm 年龄)。此外,在 R 中用 ChAMP(Morris et al. 2014; Tian et al. 2017)对 DNAm 数据进行了差异甲基化探针和区域(分别为 DMP 和 DMR)分析。ChAMP 的基因集富集分析结果进一步用 rrvgo(Sayols 2020)处理,Venn 图则用根特大学提供的在线工具绘制(http://bioinformatics.psb.ugent.be/webtools/Venn/)。除在 ChAMP 中获取基因本体(GO)条目外,还用 missMethyl 包(Phipson et al. 2016)将该包识别出的显著最可变位点(MVP)映射到基因,随后在 R 中用 Reactome PA(Yu and He 2016)进行通路分析。
RNA 测序分析
按照制造商说明,使用 Qiagen 的 RNeasy 试剂盒提取 RNA。用 Nanodrop 2000c 分析 RNA 样本的浓度和纯度。RNA 样本保存于 −80°C。对于 bulk RNA 测序,用无 RNA 酶的 H2O(Qiagen)将 RNA 稀释至约 50 ng/μL,并送至波恩大学下一代测序核心平台。在那里,样本先进行 QuantSeq 3′mRNA-Seq 文库构建(Lexogen GmbH,奥地利维也纳),随后在 HiSeq 2500 V4(Illumina)上以 high output 模式测序。
原始数据由波恩大学生物信息学核心平台处理。简言之,先用 cutadapt 去除 Illumina Universal Adapter(Martin 2011),再用 STAR 将 reads 比对到人类基因组(GRCh38)(Dobin et al. 2013)。使用 featureCounts 将 reads 分配到 Ensembl 定义的基因(Liao et al. 2014)。一个 read 被计数需满足三个条件:第一,唯一比对;第二,与基因的链一致;第三,仅与一个基因重叠,即该 read 可以无歧义地分配到单个基因。只有跨样本总 read 计数至少为 100、且至少 2 个样本的计数不低于 40 的基因才纳入下游统计分析。统计分析在 R 环境中使用 Bioconductor 包 limma 完成(Huber et al. 2015; Ritchie et al. 2015)。由于同一供体的样本会随时间及细胞状态重复测量,统计模型将供体作为随机效应,并作为 blocking factor 传入 duplicateCorrelation 函数。此外,测序批次和性别被建模为固定效应,以校正不需要的变异。统计对比针对主要固定效应计算,该效应由年龄组、细胞类型和时间合并为单一变量来定义。使用 Benjamini-Hochberg 方法计算每个对比经多重检验校正的 p 值(false discovery rate,FDR)。数据可视化,如火山图和热图,分别使用 R 包 ggplot2(Wickham 2016)和 ComplexHeatmap(Gu et al. 2016)生成。差异表达基因(FDR < 0.05)的通路富集分析(Fisher 检验)使用 Bioconductor 包 clusterProfiler 完成(Wu et al. 2021)。仅考虑基因集大小至少为 10、至多为 500 的通路。在部分分析中,富集的 GO terms 按所述方法用 rrvgo 以 treemap 图呈现。
免疫细胞化学与荧光成像
对于转化后前 2 周内的细胞染色,贴壁细胞和悬浮细胞均需收集。为此,先收集上清液,并按前述方法用 Accutase 消化贴壁细胞。将贴壁部分与非贴壁部分合并,随后使用合适的离心杯以 500 g 离心 7 分钟,将细胞甩到载玻片上。之后,在室温下用溶于 HBSS 的抗 CD71 小鼠单克隆 IgG 抗体(1:100;BD Pharmingen,Franklin Lakes,美国)孵育 30 分钟。用 HBSS 洗去抗体溶液,再用 4% PFA(Thermo Fisher Scientific)在室温下固定细胞 5 分钟。再用含 1% BSA 的 1× DPBS 洗涤一次后,将载玻片在含 1% BSA 和 0.5% Triton-X100(Sigma-Aldrich)的 1× DPBS 中于室温孵育 30 分钟。随后,在含 1% BSA 和 0.3% Triton-X100 的 1× DPBS 中,用抗 DACH1 兔多克隆 IgG 抗体(1:100;Proteintech,Planegg-Martinsried,德国)在室温下染色 2 小时。用 HBSS 洗涤后,在含 1% BSA 和 0.3% Triton-X100 的 1× DPBS 中,用二抗山羊抗小鼠 IgG(H + L)Alexa Fluor 555 和山羊抗兔 IgG(H + L)Alexa Fluor 488(均来自 Thermo Fisher Scientific)在室温下孵育 30 分钟。再用含 1% BSA 的 1× DPBS 洗涤细胞,然后用 2 μg/mL 4′,6-二脒基-2-苯基吲哚二盐酸盐(DAPI;Sigma-Aldrich)在室温下染核 5 分钟。最后,用 1× DPBS 洗涤载玻片,并使用 133.33 mg/mL Mowiol-488 加 25 mg/mL DABCO(均来自 Carl Roth)封片并盖上盖玻片。
所有贴壁生长的细胞制备物均用4% PFA在室温下固定10 min,随后用1× DPBS洗涤一次。细胞用含10% FCS的1× DPBS在室温下封闭2 h。封闭液中加入0.5% Triton-X100以透化细胞。封闭后,细胞与稀释于含5% FCS + 0.3% Triton-X100的1× DPBS中的一抗在4°C孵育过夜:鸡多克隆IgY抗MAP2(1:1000;Bio-Techne)、小鼠单克隆IgG抗γH2AX(1:250;Merck Millipore)、小鼠单克隆IgG抗LMNA/C(1:200;Abcam, Cambridge, UK)、小鼠单克隆IgM抗O4(1:500;Bio-Techne)、小鼠单克隆IgG抗S100β(1:1000;Sigma-Aldrich)、小鼠单克隆IgG抗SOX2(1:100;Bio-Techne)、小鼠单克隆IgG抗TUBB3(1:1000;BioLegend, San Diego, USA)、兔多克隆抗GFAP(1:1000;Merck Millipore)、兔多克隆IgG抗LAP2a(1:250;Abcam)、兔多克隆IgG抗NES(1:200;Bio-Techne)以及兔单克隆IgG抗DCX(1:200;Abcam)。次日,细胞用1× DPBS + 0.3% Triton-X100洗涤三次,随后与稀释于含 + 0.3% Triton-X100的1× DPBS中的二抗在室温下孵育2 h:山羊抗鸡IgY(H + L)Alexa Fluor 647偶联物、山羊抗小鼠IgG(H + L)Alexa Fluor 488及555偶联物、山羊抗小鼠IgM(H + L)Alexa Fluor 488偶联物以及山羊抗兔IgG(H + L)Alexa Fluor 488及555偶联物(均购自Thermo Fisher Scientific)。再用1× DPBS + 0.3% Triton-X100洗涤三次后,用2 μg/mL DAPI在室温下孵育5 min以复染细胞核。最后用1× DPBS洗涤细胞一次,再用含133.33 mg/mL Mowiol-488和25 mg/mL DABCO的封片剂封片。封片后的标本在4°C至少干燥过夜后再进行成像。
免疫荧光染色的图像采集或使用 Zeiss(德国 Oberkochen)AxioImager 手动完成,或使用 IN Cell Analyzer 2200(GE Healthcare Bio-Sciences Corp,美国 Piscataway)自动完成。用于定性展示的图像,其色彩亮度和对比度或在图像采集后立即用所用显微镜配套软件调整,或事后用 ImageJ(National Institutes of Health,美国 Bethesda;版本 1.52a Java 1.8.0_181,64 位)调整。免疫荧光染色的定量分析在未经修改的原始数据上进行,使用 CellProfiler(Kamentsky et al. 2011;Broad Institute,美国 Cambridge;版本 2.2.0)流程,该流程按照预设参数,对所有被评估的图像自动且一致地应用主对象识别算法,并在识别出的主对象范围内进行像素强度定量。图像定量完成后,进一步使用 CellProfiler 流程对所有图像自动且一致地应用背景扣除和色彩亮度调整,以用于相应的定性展示。
数据处理与统计分析
数值原始数据按各章节所述用 Microsoft Excel(Microsoft,美国 Redmond;Office 版本 16.16.27)处理。点图在 Microsoft Excel 中生成,箱线图则使用 BoxPlotR 的网页工具创建(http://shiny.chemgrid.org/boxplotr/)。箱线图中,中线表示中位数,箱体边界表示由 R 软件确定的第 25 和第 75 百分位数,须线从第 25 和第 75 百分位数向外延伸 1.5 倍四分位距,离群值用点表示,数据点以空心圆绘制。如有说明,统计分析在 R 中进行。首先,为确定变量是否满足线性模型的假设,分别进行 Kolmogorov–Smirnov 检验或 Shapiro Wilk 检验,以及 Levene 检验或 F 检验,以考察正态性和方差齐性。若所分析的变量呈正态分布,则分别进行 Welch 双样本 t 检验和独立单因素 ANOVA,以比较两组和两组以上。ANOVA 之后进行两两比较,方差齐性和方差不齐时分别使用 Tukey 诚实显著差异检验和 Games-Howell 检验。若所分析的变量不呈正态分布,则计算相应的非参数检验,即 Wilcoxon 秩和检验和 Kruskal Wallis 检验。Kruskal Wallis 检验之后使用 Wilcoxon 秩和检验进行多重比较。显著性水平设为 p < 0.05,进行多重比较时按默认方式校正。图中显著性水平标示如下::p < 0.05;:p < 0.01,:p < 0.001,****:p < 0.0001。图片使用 Inkscape(Free Software Foundation Inc.,美国 Boston;版本 0.92.2)拼装。
结果
年龄 0–101 岁供者的血细胞均可衍生出人 iNSC
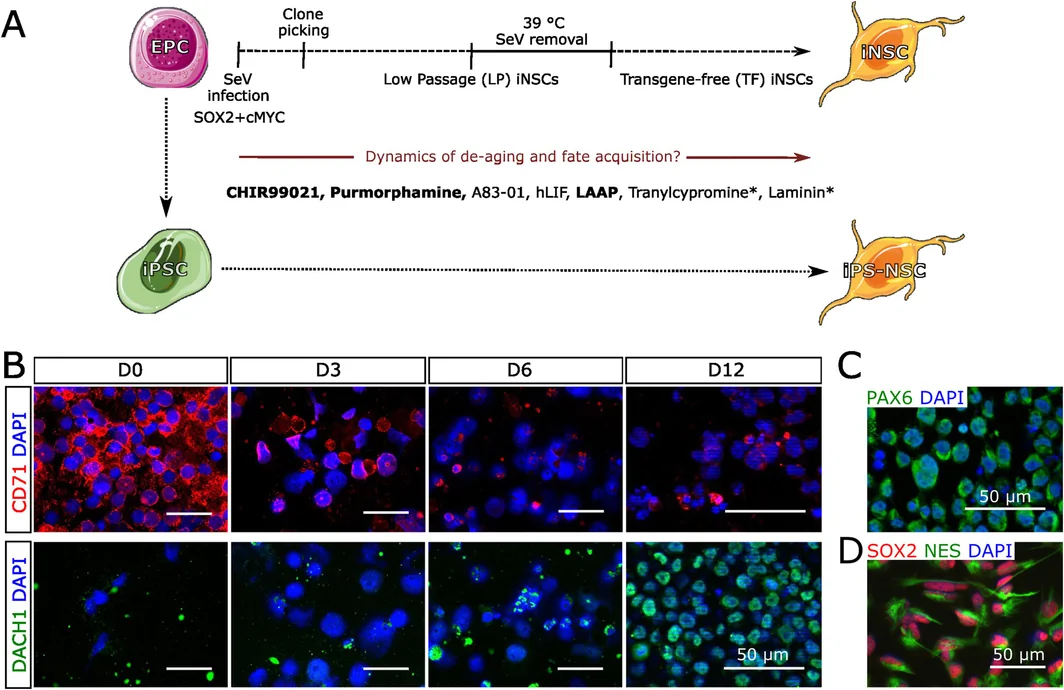
我们此前的研究首次证明,由 31 至 62 岁供者的 EPC 生成的 iNSC 表现出表观遗传年龄的显著降低(Sheng et al. 2018)。为了更细致地研究衰老特征的重置,我们首先将供者队列扩大到 15 人,年龄跨度从 0 岁到 101 岁(表 S1)。作为对照,我们从同一批 EPC 样本中制备了同源的 iPSC 来源 NSC(iPS-NSC;Reinhardt et al. 2013)——作为 iPSC 的衍生物,它们会经历完全的年龄重置(Lo Sardo et al. 2017;Sheng et al. 2018)。两种方案均通过促进 sonic hedgehog 和 Wnt 信号维持增殖,所得 NSC 的转录组和分化潜能高度相似(图 1A;Sheng et al. 2018)。生成 iNSC 时,我们采用 SeV 系统实现 SOX2 和 cMYC 的强过表达。SeV 转导后,EPC 在数天内下调血细胞标志物 CD71,且在感染后第 12 天即可在转化中的细胞里检测到 NSC 标志物 DACH1 的表达(图 1B)。同样在这个时间点,细胞也已表达 PAX6(图 1C)。我们确认,即使在去除转基因并延长体外培养之后,iNSC 及其同源 iPS-NSC 细胞系仍均一表达 NSC 标志物 SOX2 和 NES(图 1D;图 S1A)。SNP 分析的质量控制证实,iNSC 和 iPS-NSC 在细胞重编程及随后至少 20 代扩增(相当于长达 6 个月的连续体外培养)后基因组保持完整(图 S1B)。此外,iNSC 和 iPS-NSC 均能成功分化为 TUBB3 阳性神经元、S100β 和 GFAP 阳性星形胶质细胞以及 O4 阳性少突胶质细胞(图 S1C)。
iNSC 转化伴随衰老特征的长期丢失
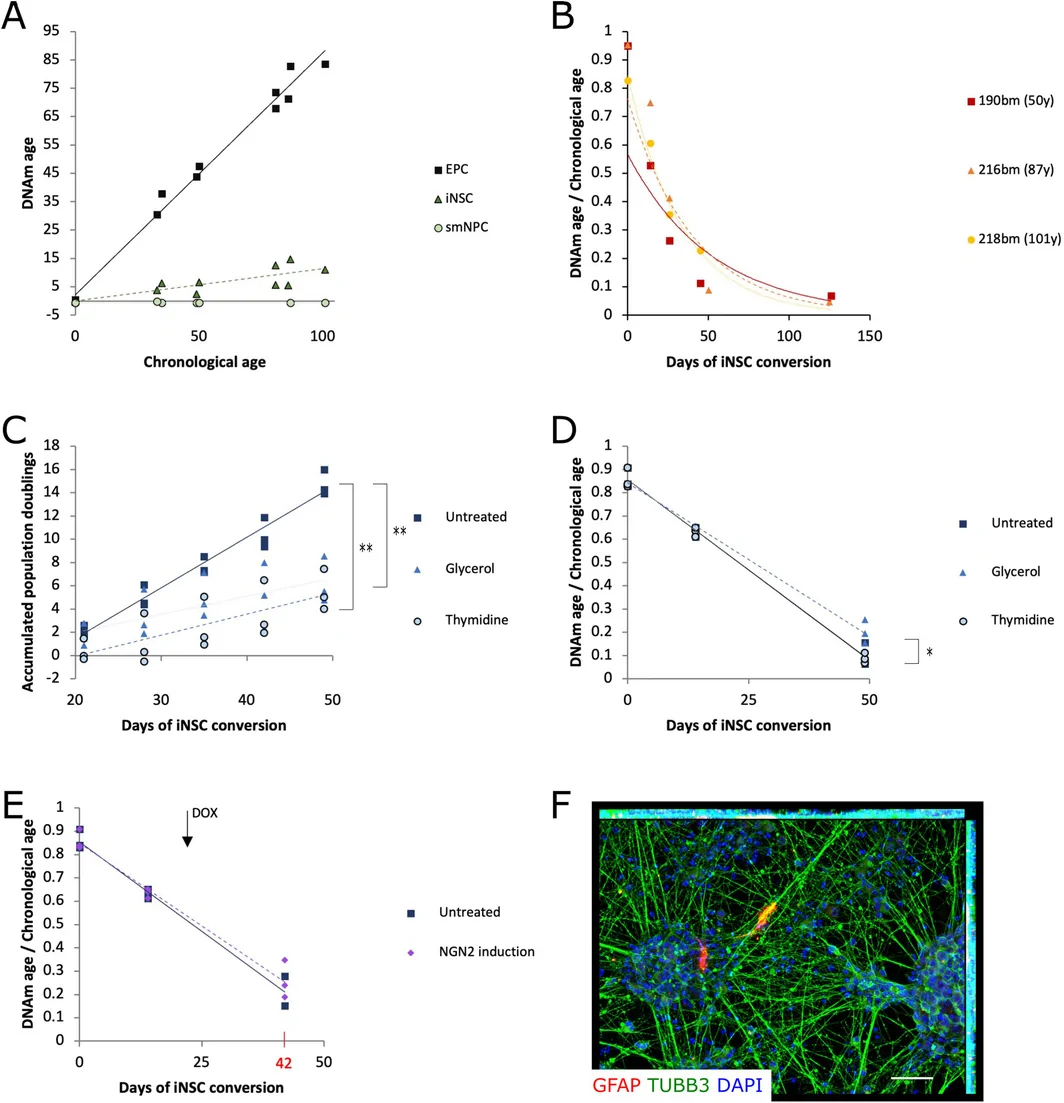
我们首先用 Horvath 等人(2018)发表的 DNAm 年龄预测算法,评估了扩大后队列的表观遗传年龄,样本包括来源 EPC、低代次 iNSC 和 iPS-NSC。不出所料,EPC 的 DNAm 年龄与各供体的实际年龄高度相关,说明该年龄预测算法是准确的。与已发表数据一致,所有 iPS-NSC 细胞系无论供体年龄多大,都表现出胚胎样的表观遗传年龄。有意思的是,iNSC 同样出现了显著的表观遗传去衰老,且跨越所有供体年龄段:低代次 iNSC 的 DNAm 年龄平均仅为各供体实际年龄的 13%(图 2A)。这一结果在不同年龄供体上均可重复,我们由此进一步研究血液向 iNSC 转分化的过程中,衰老相关特征随时间如何变化。我们追踪了三个 iNSC 细胞系的 DNAm 年龄动态,其供体年龄为 50 至 101 岁,结果发现这种表观遗传去衰老在很大程度上是一个长期过程,可持续数周;iNSC 转化大约需要 50 天,大部分衰老相关的表观遗传特征才被重置(图 2B)。
DNAm年龄的差异未必一定会在功能层面影响生物学年龄,但我们仍接着考察了通常与衰老相关的细胞标志。具体而言,我们在不同实验中,将来自不同年龄供体(0岁、87岁和101岁)的已建立、无转基因(TF)iNSC与其同基因iPS-NSC进行比较,确认这些iNSC不存在细胞衰老标志。首先,我们发现与衰老负相关的核纤层相关LMNB和LAP2α(Scaffidi and Misteli 2006;Shah et al. 2013)在两种细胞类型和各年龄组中表达相似。与衰老相关的基因RANBP17、LAMA3和PCDH10(Mertens et al. 2015),以及衰老相关基因CDKN1a和CDKN2a,在年轻和年老供体来源的iNSC与iPS-NSC中同样表达相似(图S2A)。尽管衰老时LMNA/C表达的定性变化比表达水平的绝对差异研究得更充分,但LMNA/C的表达在iNSC中倾向于高于同基因iPS-NSC,在年轻供体来源的细胞中倾向于高于年老供体来源的细胞——我们在RNA和蛋白质水平都观察到了这一趋势(图S2A、B)。其次,对p62丰度和LC3转化的Western blot分析显示,iNSC的自噬没有受损(图S2C)。最后,iNSC和iPS-NSC中的DNA损伤和线粒体ROS产生总体相当(图S2D、E)。总之,这些数据表明,即使来自极年老供体的iNSC,在直接转化后也在表观遗传和细胞层面发生了去衰老,与胚胎阶段样的iPS-NSC高度相似。
iNSC转化过程中的表观遗传去衰老不依赖干细胞增殖
考虑到体细胞重编程为自我更新的iPSC(Lo Sardo et al. 2017)以及直接转化为增殖性iNSC时,都会观察到衰老相关表观遗传特征的丢失,而转分化为有丝分裂后神经元时则不会(Huh et al. 2016),我们推测表观遗传去衰老可能由干细胞持续的丝裂活性驱动。因此,我们使用来自三名年老供体(81–86岁)的细胞,进行了两组操纵iNSC增殖的实验。首先,从转化第14天开始,我们用甘油——已知可降低多种细胞类型的增殖——或胸苷处理iNSC;胸苷常用作细胞周期同步化试剂,因为它将细胞阻滞在细胞周期的G1/S期。尽管作用方式不同,两种处理都导致转化第49天时累积群体倍增数显著减少(图2C)。然而,无论是甘油处理还是胸苷处理的培养物,其相对DNAm年龄均与未处理培养物无显著差异,尽管甘油处理培养物的相对DNAm年龄较胸苷处理培养物有轻微但具统计学意义的升高(图2D)。
随后,我们在转化第 7 天用携带多西环素诱导型 NGN2 表达系统的慢病毒感染 EPC 来源的 iNSC。已有研究表明,强制诱导 NGN2 可快速诱导人 NSC 向神经元分化(Ho et al. 2016)。再扩增 14 天后,一部分感染细胞继续维持增殖状态,其余则在促分化条件下接受 DOX 诱导。在转化第 42 天(即分化 20 天后),过表达 NGN2 的分化培养物的相对 DNAm 年龄与增殖中的 iNSC 无显著差异(图 2E),尽管强制过表达 NGN2 诱导分化的培养物确实主要由 TUBB3 阳性神经元和少量 GFAP 阳性星形胶质细胞组成(图 2F)。总之,我们的数据表明,iNSC 转化过程中的表观遗传去衰老是一个漫长的过程,且不依赖于持续的细胞增殖。
iNSC 身份的漫长巩固过程
我们随后在更大规模上评估了iNSC转化过程中的DNAm变化,纳入了本项目编程建立的细胞系数据,以及我们此前发表的研究(Sheng et al. 2018)中产生并公布的数据。总计,我们纳入了来自12名供体的EPC及其衍生低代次(LP;P3–P5)iNSC细胞系的DNAm数据。对于其中部分供体,我们还纳入了iNSC转化早期采集的样本,即转化第14天(N = 6)和第26天(N = 4)新出现的神经上皮样培养物,以及长期培养后的无转基因iNSC(TF;P21;N = 3)。原始数据过滤后,共比较了这37个样本中的728,674个探针。我们发现,EPC与第14天iNSC在多维标度图中形成两个截然不同的聚类(图3A),而较晚时间点采集的样本彼此颇为相似。随后,我们将显著的最可变位点(MVP;Benjamini-Hochberg校正p < 0.05)映射到基因,评估转化过程中各时间点对比所共同影响的位点数量(图3B)。随后的Reactome通路分析揭示了一个广泛的通路谱,其中大多数可归入五类之一:(i)神经系统,尤其是神经元迁移、神经突生长与轴突导向;(ii)多种组织中的细胞迁移、黏附与分裂,包括与细胞外基质(ECM)和间充质-上皮转化(MET)相关的通路;(iii)信号转导;(iv)血管生成;(v)造血系统(图S3)。除信号转导和造血系统外,其余三类的条目在iNSC转化的所有阶段均受调控。接着,我们直接对鉴定出的差异甲基化区域(DMR;FDR < 0.05)进行基因集富集分析。值得注意的是,在iNSC转化及体外培养所有阶段共同富集的45个基因本体(GO)条目中,有14个与神经系统发育相关,如“神经发生”“轴突发育”和“神经元投射形态发生”(表S2)。在该分析中,形态发生、细胞骨架和信号转导相关条目同样占据了其余共同调控GO条目的大多数。
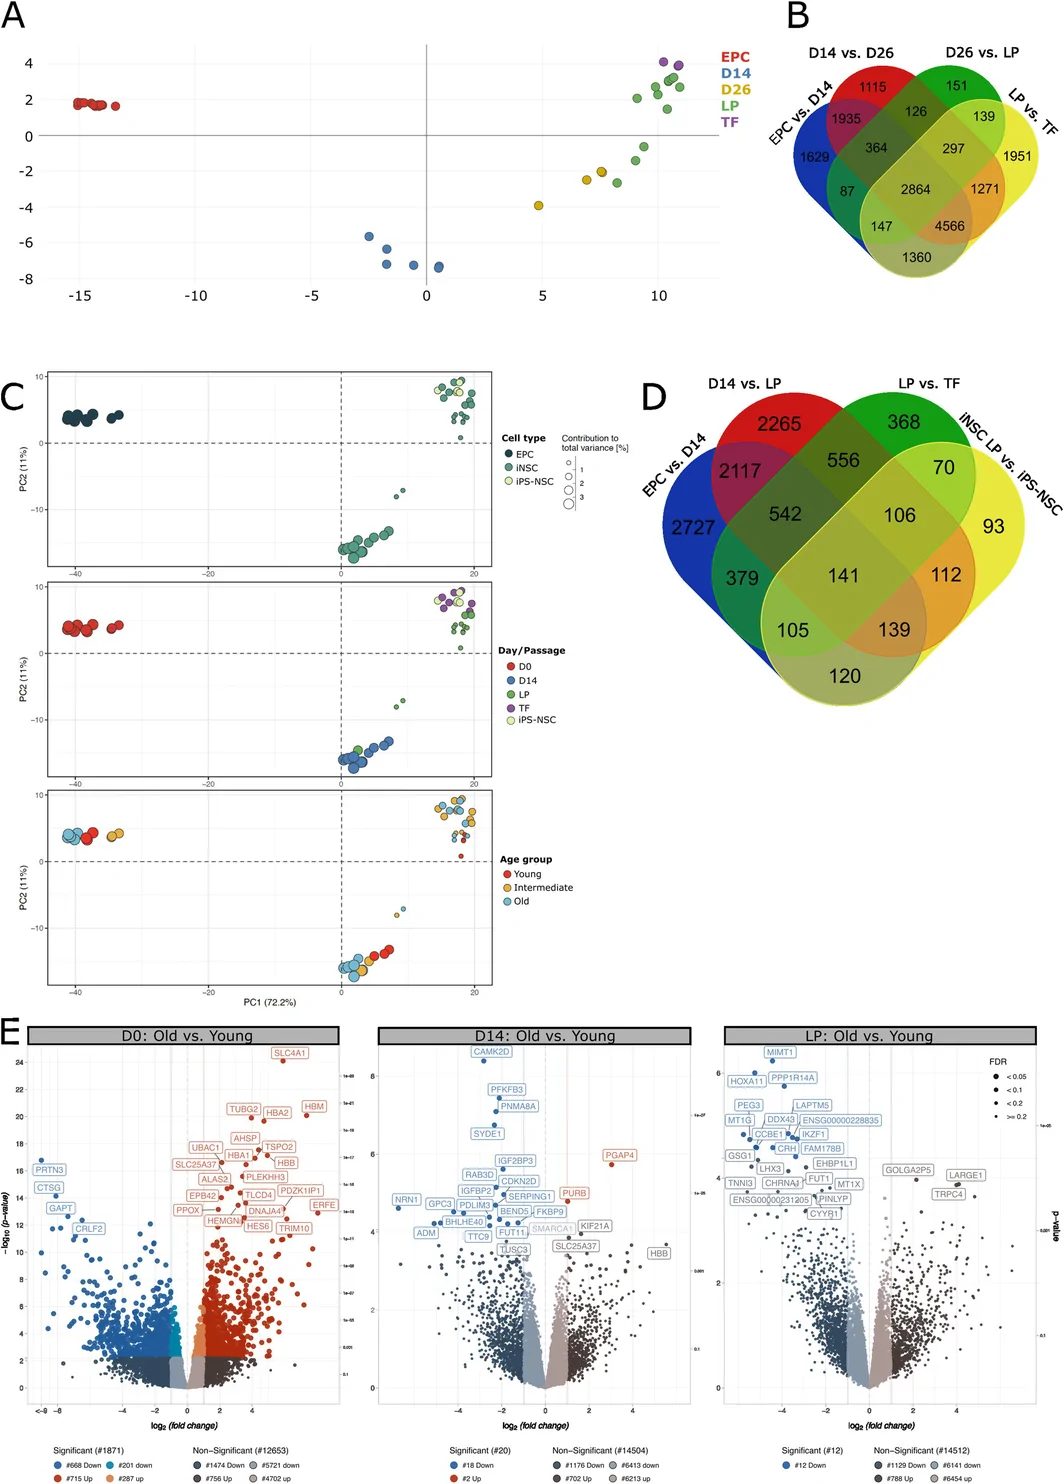
与DNAm分析类似,我们也评估了iNSC转化过程中的全局转录组变化。具体而言,我们纳入了12个EPC样本,以及10个Day 14、14个LP(P4–P6)和7个TF(P18–P21)iNSC样本。对于5名供体,我们还纳入了LP(P6)阶段的同源iPS-NSC样本作为参考。对该RNA测序数据集进行主成分分析(PCA)显示,所有EPC样本形成一个独立的聚类,而iNSC样本则分布在两个主要聚类中。其中一个聚类主要由Day 14 iNSC组成,另一个聚类由LP和TF iNSC组成,后者与iPS-NSC混杂在一起(图3C)。具体而言,比较EPC与Day 14 iNSC以及Day 14与LP iNSC时,iNSC转化早期分别有6270和5978个基因发生改变,而比较LP与TF iNSC时仅有2267个基因存在差异表达(图3D)。
值得注意的是,当将所有供体划分为年轻(0岁)、中年(31–50岁)或年老(62–101岁)供体年龄组时,我们在PCA中已经注意到,年轻、中年和年老供体在EPC阶段有轻微分离,但在iNSC转化的后期阶段逐渐混杂在一起(图3C)。按iNSC转化的每个分析时间点检索年龄组之间的DEG,我们发现在转化第0天的起始血细胞中,来自年轻和年老供体的1871个基因表达存在显著差异。然而,在转化第14天和LP阶段,年龄组之间分别仅有20和12个基因存在差异表达(图3E)。这一观察结果表明,来自不同年龄供体的细胞在转化过程中随时间推移在转录组上变得更加相似。不过,此时必须指出,尤其是年轻供体组的样本量很小(N = 3)。此外,年轻供体组仅包含新生儿,而另外两组跨越2至4个十年。这两个因素都可能使所进行的比较产生偏差并限制统计效力。
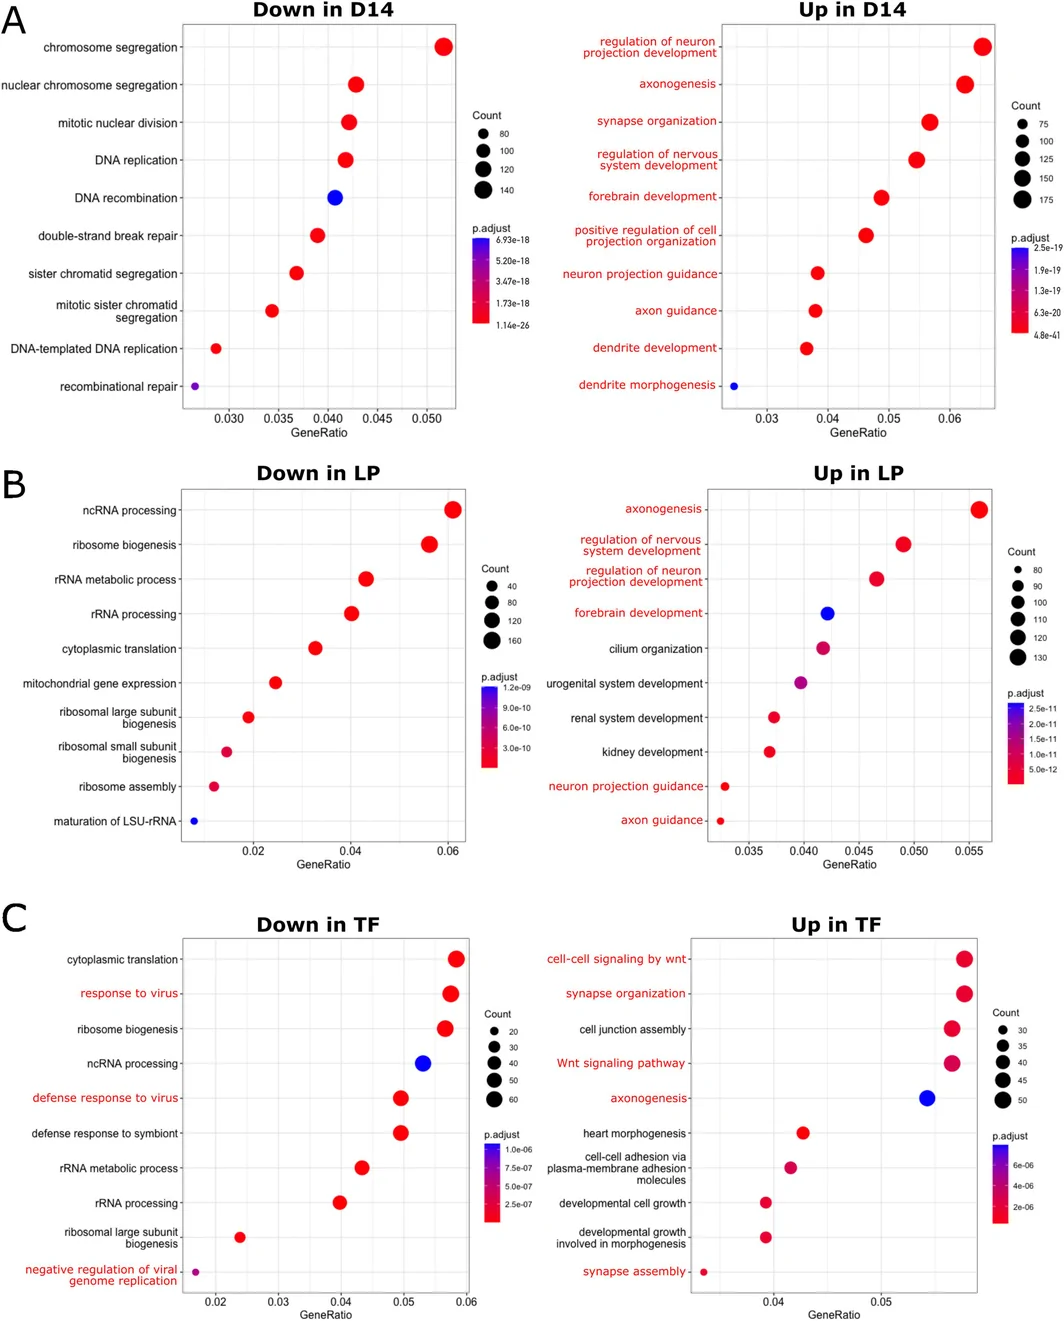
由于 iNSC 转化过程中主要的转录组变化无法用观察到的表观遗传“去衰老”现象解释,我们最后对 iNSC 转化不同阶段之间发生改变的基因做了 GO 术语富集(过表征分析)。分析显示,iNSC 转化前 14 天里上调和下调的基因几乎分别只与神经谱系和 DNA 复制与修复相关(图 4A)。此后,从第 14 天到 LP,与翻译相关的基因下调,这提示血液到 iNSC 的命运转变所涉及的大部分蛋白质组变化确实在 LP 之前就已完成。在上调基因中,排名前 10 的 GO 术语有 6 个与神经系统相关(图 4B)。从 LP 到 TF 阶段,除翻译外,与病毒应答相关的基因也出现下调,这与该时期高温处理去除 SeV 转基因相符。另一方面,上调基因对应的前 10 个 GO 术语中仍有 5 个与神经系统直接或间接相关(图 4C)。
总之,这些数据表明,尽管在SeV感染后数天内即可获得NSC特征性形态并表达特征性NSC标志物,但细胞身份在转录组和表观遗传层面的完整巩固,在血液向NSC命运转变启动后需要数周时间。
讨论
深刻而持久的表观遗传去衰老,延续至分化后期
我们的研究结果表明,外周血来源EPC直接转化为iNSC伴随着显著的表观遗传去衰老。通过SOX2和cMYC短暂过表达生成的iNSC,其DNAm年龄不足原始血细胞的5%,而这些血细胞取自0至101岁的供者。出乎意料的是,这一表观遗传去衰老过程在很大程度上是持久的,贯穿iNSC转化的前50天。
经典iPSC重编程过程中也观察到表观遗传去衰老,约20天内即可完成完全重置(Gill et al. 2022; Olova et al. 2019)。但在iNSC转化中,这一过程动态要慢得多,单个供者细胞系大约7周后才将表观遗传去衰老水平降至实际年龄的约20%。需要强调的是,尽管DNAm年龄被认为是生物学年龄的替代指标,但它显然无法涵盖与生物学衰老相关的全貌,尤其是在功能层面。为此,在体外重编程研究中,对部分细胞衰老标志物进行分析正是为了弥补这一局限(另见Studer et al. 2015的综述)。沿着这一思路,我们展示,一旦建立为可扩增的细胞群体,即使来自极高龄供者(87–101岁)的iNSC也不存在经典的年龄相关细胞变化,如核纤层改变、自噬流和线粒体功能受损,以及衰老标志。所有这些特性均与同基因iPS-NSC相当,而后者因其iPSC来源,可被认为缺乏细胞年龄相关标志。综合来看,这些数据印证了我们的结论:iNSC转化产生的细胞不带衰老特征。
有意思的是,在直接以转录因子为基础的神经转化中,表观遗传去衰老似乎并不局限于本文报道的 SOX2/cMYC 方案。梳理这一领域的文献时,我们注意到 Thier 等人(2019)的工作,他们用 BRN2、KLF4、ZIC3 和 SOX2 将人成纤维细胞转化为神经板边界干细胞(NPBSC)。我们用两种不同的 DNAm 年龄计算算法(Horvath 2013;Horvath et al. 2018)对其公开的 DNAm 数据做了分析,发现预测为中年的人源成纤维细胞(分别为 46–48 岁和 33–38 岁)得到的 NPBSC 年龄大幅回退(分别为 1–2 岁和 0.4–0.8 岁;数据未展示)。可见,不仅血液到 iNSC 的转化,人成纤维细胞到 NPBSC 的转化同样伴随表观遗传去衰老过程。考虑到这两种转化范式的唯一共同点是 SOX2 过表达,这个转录因子或许值得在体细胞去衰老的背景下进一步研究。不过值得注意的是,也有其他研究将 Myc 的表达与细胞衰老联系起来(Neumann et al. 2021)。
值得注意的是,当新生成的 iNSC 处于不同的抑制增殖培养条件时(即用甘油或胸苷处理,或在促分化培养基条件下过表达 NGN2),表观遗传去衰老仍以与持续增殖培养相近的程度继续进行。我们并未预期 iNSC 来源的分化培养会完全保留起始 EPC 的 DNAm 年龄,但如果增殖是 DNAm 年龄重置的主要驱动力,我们本应检测到增殖培养与分化培养之间的差异。我们最初这样假设,是因为重编程为 iPSC 和转化为 iNSC 都伴随增殖,而无需中间增殖步骤、直接以转录因子为基础将成纤维细胞转化为 iN 则能保持表观遗传年龄(Huh et al. 2016)。表观遗传去衰老在分化中的神经元培养里持续进行,这进一步提示该过程独立于细胞命运转化。就此而言,我们的转分化系统或可作为蓝图,供未来研究聚焦体细胞中年龄相关特征逆转的潜在驱动因素。不过值得注意的是,鉴于 Myc 的表达——即便是内源诱导而非外源过表达——已被证明对于成纤维细胞向 iPSC 命运转变过程中至关重要的生物合成过程不可或缺(Zviran et al. 2019),未来研究必须审慎处理转基因持续存在和/或内源转化因子被诱导表达所带来的影响,即使在非增殖的体细胞系统中也是如此。
iNSC DNAm 与转录组特征的长期固化
在考察转化过程中 DNAm 变化的质量时,我们发现大多数受调控的通路要么与神经系统、血液、细胞形态发生和细胞骨架相关的分类有关,要么与细胞功能有关,包括迁移、黏附、分裂和信号传导。考虑到转化过程包含从间充质细胞群向上皮样细胞群的转变——自由移动的血液祖细胞被转分化为具有黏附性的神经上皮细胞群——细胞形态、黏附和迁移等分类发生变化在预料之中。但令我们再次意外的是,这些变化几乎贯穿 iNSC 转化的所有阶段,一直持续到 iNSC 已经去除转基因并长期扩增之后。
在转录组层面,变化同样持续了很长时间。指示早期神经命运进入的特征主要在前 2 周内建立,此时新生成的 iNSC 已达到稳定增殖的 PAX6 和 DACH1 阳性状态。然而,被视为进一步神经元成熟前提的类别,如轴突发生和突触组织,却一直上升到非常晚期的无转基因阶段——尽管细胞始终处于促进增殖的培养条件中。其他差异表达基因聚类,例如 Wnt 信号通路,可能部分源于特定培养条件对该通路的促进。从 LP 阶段向 TF 阶段过渡时的病毒应答特征也是如此,这与 SeV 的清除相符。综合来看,我们的数据表明,EPC 向 NSC 的编程过程中,命运获取与固化过程出乎意料地漫长,并伴随延长的表观遗传去衰老。
在这一背景下值得注意的是,我们的 RNA 测序数据的主成分分析表明,只有在 SOX2/cMYC 过表达启动之前,才能依据转录组将年轻、中间和年老供体区分开来。尽管我们的分析受限于相对较小的组规模,也无法排除所观察到的命运转变相关变化(其强度大得多)可能掩盖了去衰老相关变化,但这一观察可能提示,转录组的去衰老或许比表观遗传特征的丢失更快实现,且转录组变化主要由过表达的转录因子本身而非表观遗传变化所诱导。在一项关于泛哺乳动物和泛组织表观遗传衰老标志物的近期研究中,GO 术语“神经系统发育”被发现与衰老正相关的 CpG 位点高度显著(Lu et al. 2023)。此外,与年龄正相关和负相关的 CpG 位点均富集于 SOX2、MYC 和 OCT4 的靶标中(Lu et al. 2023)。这一关联值得进一步仔细研究,例如探讨转基因抑制对神经转化不同阶段细胞身份和年龄的影响。
SOX2/cMYC 诱导的转分化与表观遗传去衰老:彼此独立的过程,还是前多能阶段的证据?
放在更大的背景下看,SOX2 和 cMYC 都是 iPSC 重编程的重要组成部分,而“部分”或“中断”的重编程已被大量体外和体内实验用来消除衰老特征、实现机体再生(综述见 Puri and Wagner 2023;Simpson et al. 2021;Singh and Zhakupova 2022)。值得注意的是,近期有报道称,由 30 个月大小鼠尾尖成纤维细胞转化而来的 iNSC,其 DNAm 年龄重置程度差异极大。在过表达工程化的 Sox17(eSox17FNV)变体并联合 Klf4 ± Brn2 和 cMyc 之后——该组合已被证明与 Sox2 转化汇聚于同一机制,即在经典 SoxOct 基序上与 Brn2 二聚化——成纤维细胞来源的 iNSC 的 DNAm 年龄落在 6.9 至 27.9 个月之间(Weng et al. 2023)。也就是说,一些克隆系似乎保留了源细胞的大部分年龄相关 DNAm 特征,另一些则在转化过程中经历了表观遗传去衰老。耐人寻味的是,作者提出,在 Klf4 加 eSox17FNV 的双因子组合中加入 cMyc,可能促进细胞进入一种 Oct4 阳性、Nanog 阴性的前多能状态(Weng et al. 2023)。但这一研究并未考察经由前多能阶段的转变是否与表观遗传去衰老相关,甚至是否为后者所必需。
我们此前的研究结果没有提供SOX2/cMYC诱导的iNSC发生多能性转变的证据(Sheng et al. 2018)。不过,当前RNA测序数据中检测到肾脏、泌尿生殖系统和心脏特征的出现,这与部分重编程的概念并不矛盾——培养基条件最终将细胞导向神经命运。但值得注意的是,这些特征在低代次时受到中间水平的调控,也就是说,并非出现在转化的最初几周,而如果存在多能性转变,那正是预期会发生的时间窗口。此外,在iPSC的重编程和转录因子介导的分化过程中,以及成纤维细胞直接转化为iNSC的过程中,也观察到过异常命运的出现(Deng et al. 2021; Lin et al. 2021; Treutlein et al. 2016)。因此,尽管现有数据不支持iNSC编程过程中存在多能性转变,但要确定新出现的iNSC在多大程度上接近多能性、以及这种接近在多大程度上是观察到的表观遗传去衰老现象所必需的,仍需要单细胞分辨率的、精细的长时间程研究。由于我们确实观察到同一供体来源的不同细胞系在DNAm年龄上存在一定程度的异质性(例如,比较多克隆细胞系与单克隆来源的细胞系),这类研究还可以进一步揭示单个细胞在表观遗传去衰老过程中的幅度和动态差异,以及iNSC培养物的去衰老是否部分源于DNAm年龄衰减特别快的优势克隆的扩增。
我们模型系统的局限
除了前多能状态是否参与这一问题之外,还必须明确承认:我们无法排除命运转变本身可能带来表观遗传后果,从而影响 DNAm 年龄的计算,并使我们关于 iNSC 转化过程中表观遗传去衰老的结论产生偏差——因为不存在“真正衰老”的 NSC 细胞群体,无法据此生成参考数据集。这一点尤其重要,因为据报道,神经组织的 DNAm 年龄系统性地低于实际年龄,而血液并非如此(Horvath et al. 2018),这可能进一步扭曲我们在该系统中观察到的表观遗传去衰老的真实幅度。
转化系统中的另一个潜在混杂因素是 O2 浓度的波动。直到转化第 35 天,也就是在低代次取样 iNSC 前约一周,细胞一直在低氧(5% O2)条件下培养。但细胞并未在低氧舱中操作,因此会出现间歇性的短时常氧区间,例如换液和传代期间。从第 35 天起,细胞永久置于大气氧浓度(21% O2)下培养。已知低氧通过影响 HIF1α、SIRT1、AMPK 和 NFκB 等因子,对线粒体功能、自噬和炎症等同样参与衰老过程的机制产生深远的细胞与分子效应(综述见 Yeo 2019)。另一方面,低氧培养条件(5% O2)可被视为更接近组织环境,并已被证明能促进体外哺乳动物 NSC 的存活与干细胞特性(综述见 Mannello et al. 2011)。此外,很大一部分与年龄相关的 DNAm 特征在 iNSC 转化第 26 天时就已重塑,而在此之前 iNSC 一直培养于 5% O2 条件下。然而,我们不能排除第 35 天前的氧水平短时波动以及此后切换至大气氧浓度,对所观察到的表观遗传去衰老现象有所贡献。
结论
总之,我们的研究表明,在基于转录因子的人血细胞转化过程中,NSC 命运的巩固以及(表观遗传层面的)去衰老都是耗时较长的过程。这一长达数周的时间窗口,或许为机制研究提供了独特的机会,可用于区分这两个过程,并阐明体细胞表观遗传去衰老的驱动因素。就此而言,我们的转化系统也可作为细胞去衰老背景下部分或中断 iPSC 重编程的替代方案。
作者贡献
L.J.B.、C.S.、M.P.、A.T.、W.W. 和 O.B. 构思并设计了本研究。L.J.B.、R.K. 和 C.S. 完成了细胞培养实验。L.J.B.、J.F. 和 A.B. 分析并整理了数据。L.J.B.、A.B.、M.P.、A.T.、W.W. 和 O.B. 对数据进行了阐释。L.J.B. 和 O.B. 撰写了稿件。所有作者均阅读并认可稿件的最终版本。
资助
本研究得到 Horizon 2020 框架计划(874758)、Deutsche Forschungsgemeinschaft(CRU344/417911533、SFB 1506/1)以及 Bundesministerium für Bildung und Forschung(01EK1603A-Neuro2D3)的资助。
伦理声明
从健康供者采集人体体细胞材料(即血液)用于 iPSC 重编程和 iNSC 转化,均依照德国法律进行,并获波恩大学医学中心伦理委员会批准(批准号:275/08)。所有受试者均签署了书面知情同意书。
利益冲突
J.F. 目前是 Pryzen UG 的创始人、股东兼首席执行官,该公司提供生物信息学服务。W.W. 是 Cygenia GmbH 的联合创始人,该公司可为其他科研人员提供表观遗传分析服务(www.cygenia.com)。O.B. 是波恩 LIFE & BRAIN GmbH 的联合创始人及股东。其余作者均无需要披露的利益冲突。
补充信息
致谢
我们特别感谢 Cornelia Thiele 和 Melanie Bloschies 提供的出色技术支持,以及 Christian Felski 在数据分析方面的帮助(三人均来自波恩大学医院重建神经生物学研究所)。我们还感谢 Ullrich Wüllner(波恩大学医院神经病学中心帕金森病、睡眠与运动障碍科,以及波恩德国神经退行性疾病中心(DZNE))、Anja Schneider(波恩大学医院老年精神病学与认知障碍科及 DZNE)和 Waltraut Merz(波恩大学医院产科与产前医学科)在受试者招募和采血过程中提供的协助。用于 rtTA TRE 调控 NGN2 的慢病毒及慢病毒质粒由 Laura Stappert(原波恩大学重建神经生物学研究所)惠赠。我们感谢波恩大学医学院下一代测序核心平台和生物信息学数据分析核心部门提供支持与仪器设备,相关经费由德国研究联合会(DFG)资助。此外,我们感谢波恩大学医院神经病理学系,尤其是 Alexandra Brüggemann,在细胞悬液免疫细胞化学方面提供的帮助。最后,我们感谢 Michael Ziller(明斯特大学精神病学系)在本项目过程中给予的富有启发的讨论。本研究得到以下资助:欧盟“地平线2020”研究与创新计划(资助协议编号 874758 NSC-Reconstruct,授予 O.B.)、DFG(资助项目 CRU344/417911533 和 SFB 1506/1,授予 W.W.)以及德国联邦教育与研究部(资助项目 01EK1603A-Neuro2D3,授予 O.B.;VIP+ PluripotencyScreen,授予 W.W.)。开放获取经费由 Projekt DEAL 提供并组织。
数据可用性声明
Thier et al. (2019) 发表的 DNA 甲基化数据集登录号为 E-MTAB-5808,可通过 ArrayExpress 获取。本文所报告数据的登录号为 GSE295849(DNA 甲基化数据,可通过 GEO 获取,审稿人访问令牌:glqriiuyvvudpsp)和 phs004047.v1.p1(RNA 测序数据,可通过 dbGaP 获取)。
来源: Aging Cell← 返回首页